ÖZET
Giriş:
Nekrotizan enterokolit (NEC), abartılı iltihaplanma ve epitel bariyer hasarı ile karakterize olup, iltihaplanma sinyal iletimi ile bağırsak lipid metabolik bozukluğu arasındaki ilişkinin tam olarak tanımlanmamıştır.
Yöntem:
İnsan bağırsak transkriptomik veri seti GSE46619’un analizini, sıçan IEC-6 hücreleri ve yenidoğan fare NEC modeli ile deneylerle birleştirdik. IEC-6 hücreleri LPS veya rekombinant IL-1β ile uyarıldı ve Il1b siRNA veya fenofibrat ile tedavi edildi. In vivo modunda, erkek ve diş C57BL/6 yenidoğan farelere, yenidoğan gününde AAV9-shIl1b veya kontrol vektörü verilmesinin ardından 7-10. yenidoğan gününden itibaren formül beslemesi/hipoksiye maruz bırakıldı; ayrı bir NEC grubuna fenofibrat verildi.
Bulgular:
İnsan NEC örneklerinde artmış iltihaplanma imzaları ve düşük yağ asidi metabolizması GSVA skorları gösterildi; IL1B ifadesi ile yağ asidi metabolizması skoru arasında ters ilişki bulundu. IEC-6 hücrelerinde ve fare ileumunda, iltihaplanma veya NEC benzeri hasar, sıkı birleşim ve PPARα/CPT1A ile ilişkili belirteçlerin azalması ve lipid peroksidasyonu/lipid içeriği indislerinin artması ile eşleşti. Il1b baskılanması ve fenofibrat, bu anormalliklerin her biri kısmen azalmasına ve in vivo histolojik hasarın iyileşmesine yol açtı.
Tartışma:
Bu bulgular, deneysel NEC’de IL-1β ile ilişkili inflamasyon, lipid metabolik değişiklikleri ve epitelyal bariyer hasarı arasında bağlantı kuran bir çalışma modelini desteklemektedir. Yağ asidi oksidasyon akışı ve PPARα fonksiyon kaybı test edilmediğinden, veriler doğrudan bir IL-1β-PPARα nedensel yolunu veya kesin bir PPARα bağımlılığını kanıtlamamaktadır.
1 Giriş
Necrotizing enterocolitis (NEC), prematür yenidoğanlardaki en yıkıcı gastrointestinal acil durumlardan biridir ve intestinal inflamasyon, epitelyal bariyer bozukluğu, mukoza nekrozu, bakterial translokasyon ve sistemik komplikasyonlarla karakterize edilir. Yenidoğan yoğun bakımındaki ilerlemelere rağmen, NEC patogenezi çok faktörlü ve prematürite, formül beslenme, hipoksi-iskemi, mikrobiyal disbiosis, olgunlaşmamış epitelyal onarım ve düzenlenmemiş içilimün sistemik aktivasyonunu içerdiğinden öngörülmesi ve tedavisi zor olmaya devam etmektedir (Neu ve Walker, 2011; Niño ve ark., 2016; Duchon ve ark., 2021). Bu patojenik faktörler arasında, aşırı içilimün sistemik aktivasyon, prematür bağırsağın gelişimsel hassaslığını ilerleyen mukoza hasarına dönüştüren ana olay olarak giderek daha fazla tanınmaktadır. Toll-like receptor 4 (TLR4) bağımlı inflamasyonel sinyalleme, NEC’de merkez bir yolaktır ve yalnızca epitelyal hücrelerde değil, aynı zamanda endotelyal ve immun kompartmanlarda epitelyal restitüsyonu, intestinal perfüzyonu ve mukoza bütünlüğünü bozarak etki eder (Hackam ve Sodhi, 2022).
Bağırsak epiteliyi, yalnızca pasif fiziksel bir bariyer değil; besin işlenmesini, mikrobiyal algılamayı, epitel yenilenmesini ve mukozal bağışıklık dengesini koordine eden metabolik açıdan aktif bir arayüzdür. ZO-1 ve occludin dahil sıkı bağlantı proteinleri, epitel bariyeri düzenlemesine katkıda bulunur ve bozulmaları bakteriyel translokasyon, inflamatuar amplifikasyon ve bağırsak hasarı ile ilişkilendirilir (Turner, 2009; Kuo ve ark., 2022). Claudin-2 ve claudin-15 de seçici paraselüler iyon taşınmasına katkıda bulunur. Farelerdeki bu birleşik kayıp, bağırsak Na+ geri dönüşümünü ve besin emilimini bozar ve erken postnatal dönemde beslenme yetersizliğinden ölüme yol açar (Wada ve ark., 2013). Bununla birlikte, NEC’deki bariyer bozulmasının yalnızca inflamatuar hasardan kaynaklanması beklenmez. Erken doğum bağırsaklarında, inflamatuar stres; olgunlaşmamış epitel metabolizması, sınırlı antioksidan kapasite ve enteral besine yüksek maruz kalma içeren bir doku ortamında ortaya çıkar; bu da inflamatuar ve metabolik anormalliklerin hastalık ilerlemesi sırasında birbirini güçlendirmesi olası olduğunu öne sürer (Selvikumar ve ark., 2022). Proinflamatuar sitokinler arasında, IL1B tarafından kodlanan interleukin-1β (IL-1β), epitel baiyer disfonksiyonunun güçlü bir mediatörüdür. Önceki çalışmalar, IL-1β’nin bağırsak sıkı bağlantı geçirgenliğini NF-κB-, MLCK- ve occludin-ilişkili mekanizmalar yoluyla artırabileceğini ve MIR200C-3p’ye bağlı düzenleme yoluyla occludin mRNA bozulmasını teşvik edebileceğini göstermiştir (Rawat ve ark., 2020; Kaminsky ve ark., 2021). Yine de, IL-1β’nin inflamatuar aktivasyonla epitel metabolik disfonksiyonu birbirine bağlayarak NEC ilerlemesine katkıda bulunup bulunmadığı yeterince tanımlanmamıştır.
Yükselen kanıtlar, metabolik stresin NEC’nin yalnızca ikincil bir sonucu olmadığını, aynı zamanda epitel yaralanmasına da aktif biçimde katkıda bulunabileceğini gösteriyor. Formülle beslenmeye bağlı lipid metabolizması, iyi sindirilemeyen yağ birikimi, epitelik reaktif oksijen türleri üretimi ve bağırsak iltihabı, deney NEC şiddetiyle ilişkilendirilmiş (Sodhi ve ark., 2018; Gershner ve ark., 2025). Bu gözlemler özellikle önemlidir çünkü lipid metabolizması, epitelik onarım için hem bir enerji kaynağı hem de iltihabi stres altında lipid peroksidasyonuna potansiyel bir substrat sağlar. Bu nedenle, NEC sırasında baskılanan veya uyumsuz biçimde düzenlenen metabolik yolların belirlenmesi, iltihabi sinyalleşmenin kalıcı epitelik bariyer bozukluğuna nasıl yol açtığını açıklamaya yardımcı olabilir. Peroksizom proliferatör-aktivite reseptörü α (PPARα), lipid alımını, yağ asidi oksidasyonunu, mitokondriyal bioenerjetik ve iltihabi yanıtları düzenleyen, ligand-aktiviteli bir nükleer reseptördür. Mitokondriyal uzun zincirli yağ asidi β-oksidasyonunu kontrol eden anahtar hız sınırlayıcı enzim olan karnitin palmitoiltransferaz 1A (CPT1A), PPARα tarafından düzenlenen lipid metabolik programıyla işlevsel biçimde bağlantılıdır ve PPARα’nın CPT1A transkripsiyonel aktivitesini indüklediği gösterilmiştir (Song ve ark., 2010). Bağırsakta, PPARα ile ilişkili sinyalleşme ayrıca epitelik metabolik denge, mukoza bağışıklığı, mikrobiyota etkileşimi ve geçirgenlik düzenlemesiyle ilişkilendirilmiştir (Grabacka ve ark., 2022). Ayrıca, klinik biçimde kullanılan bir PPARα ajist olan fenofibrat’ın, deney ortamında PPARα ile ilişkili bağırsak bieriyer toparlanmasını desteklediği bildirilmiştir (Crakes ve ark., 2021). Birlikte bu bulgular, bozulmuş PPARα/CPT1A ile ilişkili lipid metabolizmasının NEC’deki IL-1β ile ilişkili iltihaplanma ve epitelik bieriyer bozukluğuyla ilişkilendirilebileceği olasılığını gündeme getiriyor.
Bu çalışmada, NEC transkriptomik analizini hücre ve yenidoğan fare deneyleriyle entegre ederek IL-1β ile ilişkili iltihaplanma, PPARα/CPT1A ile ilişkili metabolik bozulmalar ve epitel bariyer hasarı arasındaki ilişkileri inceledik. Bariyer ve metabolik bozulmalar üzerindeki etkilerini değerlendirmek için Il1b baskılanması ve fenofibrat tedavisini ayrı deney müdahaleleri olarak da değerlendirdik.
2 Materyaller ve yöntemler
2.1 Biyoenformatik analiz
Gün ifadesi verileri NCBI Gene Expression Omnibus veri havuzundan elde edildi. GSE46619 veri seti, NEC, spontan intestinal perforasyon (SIP) ve iltihapsız cerrahi kontrol durumlarına sahip bebeklerin bağırsak dokusu ifadesi profillerini içerdiği için seçildi. Orijinal GSE46619 çalışması, NEC, SIP ve cerrahi kontrol bebeklerinden bağırsak dokuları içermekte ve tüm genom mikrodizi yaklaşımı kullanılarak oluşturulmuştur (Chan ve ark., 2014). NEC ve SIP biyolojik ve klinik açıdan birbirinden ayrı yenidoğan intestinal hastalıkları olduğundan, hastalığa özgü transkriptomik imzaların karışmasını önlemek için SIP örnekleri mevcut analizden çıkarıldı. Mevcut analiz için, Researchers için Ev (HOME for Researchers) web sitesi aracı üzerinden işlenen ifade matrisi NEC örneklerini (n = 5) ve Cerrahi Kontrol örneklerini (n = 4) içermektedir. Ifade değerleri log2 ile dönüştürülmüş ve kantil-normalizasyona tabi tutulmuştur. Probe tanımlayıcıları, GPL6244 Affymetrix Human Gene 1.0 ST Array anotasyonuna göre resmi gen sembollerine eşlenmiştir. Birden fazla probe ile temsil edilen genler için ortalı ifade değeri kullanılmıştır.
NEC ile Cerrahi-Kontrol dokuları arasındaki farklı ekspresyon analizi, R’deki limma paketi kullanılarak gerçekleştirildi. Benjamini-Hochberg düzeltmeli P < 0.05 ve |log2 kat değişimi| > 1 olan geneler farklı ekspresyon gösterdiği kabul edildi. Önemli ölçüde aşırı ekspresyonlanan ve baskılanan genelleri görselleştirmek için volkan grafikleri oluşturuldu. Gene Ontology biyolojik süreç, Gene Ontology moleküler işlev ve Kyoto Genom Ansiklopedisi/yol zenginleştirme analizleri clusterProfiler kullanılarak yapıldı. Zenginleştirme sonuçları, farklı ekspresyon gösterilen geneler arasında işlevsel kategorilerin aşırı temsil edilmesi olarak yorumlandı ve yalnızca yol aktivasyonu veya inhibisyonunu çıkarmak için kullanılmadı. Metabolik imzaların Molecular Signatures Database (MSigDB)’den örnek düzeyinde zenginleştirme skorlarını hesaplamak için gene set variation analizi (GSVA) yapıldı. GSVA skorları eşitsiz iki uçlu Welch t-testi ile karşılaştırıldı. BIOCARTA_PPARA_PATHWAY yolunun zenginleştirme yönünü değerlendirmek için tüm sıralanmış geneler kullanılarak gene set enrichment analizi (GSEA) yapıldı. Geneler, limma analizinden türetilmiş moderatör t istatistiği ile sıralandı. Örneklem boyutunun küçük olması nedeniyle gene-set permütasyonu kullanıldı ve normalize edilmiş zenginleştirme skoru, nominal P değeri ve FDR q değeri bildirildi.
2.2 Hücre kültürü ve uygulamalar
İestinal epitelye IEC-6 hücreleri, in vitro intestinal epitelye modeli olarak kullanıldı ve Çin Bilimler Akademisi Hücre Kültürü Koleksiyonu Hücre Bankası’ndan (Shanghai, Çin) temin edildi. Hücreler, %10 fetus sığır serumu, 0.1 U/mL inülin ve penicillin-streptomycin ile zenginleştirilmiş Dulbecco’nun değiştirilmiş Eagle ortamında, %5 CO2 içeren nemlendirilmiş inkübatörde 37 °C’de kültüre edildi. Deneylerden önce Mycoplasma kirliliği hariç tutuldu. NEC ile ilgili inflamatuar epitelye stresini modellemek için IEC-6 hücreleri 24 saat boyunca lipopolisakkarit (LPS, Escherichia coli kökenli, 10 μg/mL) ile muamele edildi. IL-1β stimülasyonunun epitelye bariyeri ve lipid metabolizması belirleyicileri üzerindeki doğrudan etkisini değerlendirmek için rekombinant rat IL-1β 24 saat boyunca 10 ng/mL konsantrasyonda kullanıldı. IL1b knockdown deneyleri için, IEC-6 hücrelerinde rat IL1b’ye hedeflenen üç bağımsız siRNA tarandı. Hücreler, üreticinin talimatlarına göre ticari bir RNA transfeksiyon reajenti kullanılarak IL1b hedefleyen siRNA veya karışık negatif kontrol siRNA ile transfekte edildi. Son siRNA konsantrasyonu 50 nM idi. Transfeksiyondan 6 saat sonra ortam, tam kültür ortamıyla değiştirildi ve hücreler 24 saat daha kültüre edildi. PPARα aktivasyon deneyleri için, Fenofibrat dimetilsülfoksitte stok çözelti olarak çözülüp kullanımdan önce kültür ortamında seyreltildi. IEC-6 hücreleri, LPS veya rekombinant IL-1β stimülasyonundan önce 2 saat boyunca 50 μM Fenofibrat ile ön muamele edildi. Dimetilsülfoksidin son konsantrasyonu, taşıyıcı ve Fenofibrat ile muamele edilen gruplar arasında özdeş tutuldu ve %0.1’i aşmadı. Hücreler ardından 24 saat boyunca LPS veya IL-1β’ye maruz bırakıldı. Gruplar Kontrol, LPS, IL-1β, LPS + Fenofibrat ve IL-1β + Fenofibrat’ı içeriyordu.
2.3 Nicel gerçek zamanlı PCR
Toplam RNA, üreticinin protokolüne uygun olarak TRIzol reajenti kullanılarak IEC-6 hücrelerinden veya terminal ileal dokulardan çıkarıldı. RNA konsantrasyonu ve saflığı spektrofotometri ile değerlendirildi; A260/A280 oranı 1,8 ile 2,1 arasında olan örnekler ters transkripsiyon için kullanıldı. RNA bütünlüğü 28S/18S rRNA elektroforezi, Bioanalyzer veya RNA bütünlük numarası ile doğrudan değerlendirilmedi. A260/A280 oranı bir saflık ölçümü olarak kullanıldı ve RNA bütünlüğünü ortaya koymaz. Bir mikrogram toplam RNA, ters transkripsiyon kiti kullanılarak cDNA’ya dönüştürüldü. Nicel gerçek zamanlı PCR, gerçek zamanlı PCR tespit sistemi üzerinde SYBR Green qPCR master mix kullanılarak gerçekleştirildi. Il1b, Tjp1 (ZO-1), Ocln (occludin), Ppara (PPARα) ve Cpt1a (CPT1A) göreli mRNA ekspresyon seviyeleri 2−ΔΔCt metodu ile hesaplandı ve Gapdh‘ye normalleştirildi. Rat ve fare primer dizileri sırasıyla Supplementary File 1 içindeki Supplementary Tables S1 ve S2‘de listelenmektedir.
2.4 Western blot analizi
IEC-6 hücreleri ve terminal ileum dokuları, proteaz ve fosfataz inhibitörleri eklenmiş buz soğukluğunda RIPA tamponu ile lize edildi. Doku örnekleri buz üzerinde homojenize edildi ve 4 °C’da 15 dakika boyunca 12.000 × g merkezkaça tabi tutuldu. Süpernatantlar toplandı ve protein konsantrasyonları BCA protein testi ile belirlendi. Her kuyuya 40 μg olacak eşit miktarlarda protein SDS-PAGE ile ayrıştırıldı ve PVDF membranlara aktarıldı. Membranlar oda sıcaklığında 1 saat boyunca %5 sığır serumu albumini ile bloklandı ve 4 °C’da gece boyu Occludin (13409-1-AP, Proteintech; 1:2000), CPT1A (15184-1-AP, Proteintech; 1:5000) ve β-actin (81115-1-RR, Proteintech; 1:20000) için tavşan birincil antikorlarla inkübe edildi. Yıkamadan sonra membranlar, oda sıcaklığında 1 saat boyunca HRP eşlik eden keçi anti-tavşan IgG ikincil antikoruyla (Biosharp, BL003A; 1:10000) inkübe edildi. Protein bantları gelişmiş kimyasal ışıma ile tespit edildi. Yoğunluk analizi ImageJ kullanılarak yapıldı ve hedef protein ifadesi β-actin’e göre normalize edildi. Hücre kültürü Western blot deneyleri bağımsız olarak üç kez tekrarlandı. Hayvan Western blot nicelendirmesi, her grup için üç bağımsız fare kullanıldı. Şekil panellerine karşılık gelen kullanıma hazır Western blot kaynak görüntüleri Ek Dosya 2 içinde sağlanmaktadır.
2.5 Transepitelyel elektriksel direnç testi
IEC-6 hücreleri, 0,4 μm gözenekli polyester membranlı kolajenle kaplı Transwell eklentilere ekildi ve stabil bir epitel tek katmanı oluşana kadar kültüre edildi. Kültür ortamı her iki günde bir değiştirildi. Transepitelyel elektriksel direnç (TEER), çubuk elektrotlarla donatılmış bir epitel volthmetresi kullanılarak izlendi. Ölçümler plakların oda sıcaklığında dengelemesinden sonra yapıldı. Her okumadan boş eklenti direnci çıkarıldı ve düzeltilmiş değer membran yüzey alanıyla çarpıldı. TEER değerleri Ω·cm² olarak ifade edildi. TEER değerleri stabil bir plato noktasına ulaştıktan sonra, hücre tek katmanları yukarıda belirtildiği gibi LPS, IL-1β, siIL1b veya Fenofibrat tedavilerine tabi tutuldu. Her deneyde grup başına en az üç bağımsız eklenti analiz edildi ve deney üç kez bağımsız olarak tekrarlandı.
2.6 Lipid peroksidasyonu ve lipid metabolik analizleri
Lipid peroksidasyonu ve lipid metabolik indislerinin biyokimyasal ölçümü için IEC-6 hücreleri veya terminal ileal dokular toplandı. Malondialdehit (MDA) ölçümü için IEC-6 hücreleri buz soğuk lizis tamponunda lize edildi ve terminal ileal dokular soğuk fosfat tamponlu tuzlu suda homojenize edildi. Hücre lizatları ve doku homojenizatları 4 °C’da 12.000 × g’da 10 dakika santrifüj edildi ve MDA seviyeleri ticari bir MDA analiz kiti (Beyotime Biotechnology, S0131S) kullanılarak ölçüldü. Toplam kolesterol (TC) ve trigliserid (TG) ölçümü için IEC-6 hücreleri ve terminal ileal dokular analiz kiti lizis tamponuyla işlendi. Lizis/homojenizasyondan sonra, üreticinin talimatlarına göre numuneler 2.000 rpm’de 5 dakika santrifüj edildi ve elde edilen süpernatantlar analizlerde kullanıldı. Bu özütler hücre veya dokulardan elde edildi, hültür ortamından değil. TC ve TG sırasıyla Düzey Toplam Kolesterol İçeriği Analiz Kiti (E1015) ve Düzey Trigliserid İçeriği Analiz Kiti (E1013) kullanılarak ayrı ayrı ölçüldü (Applygen Technologies). Protein konsantrasyonları bir BCA analiziyle belirlendi ve biyokimyasal sonuçlar protein içeriğine göre normalize edildi.
2.7 Hayvanlar, neonatal NEC modeli ve müdahaleler
Her iki cinsten, patojenden arındırılmış C57BL/6 neonat fareler, Nanjing Junke Biological Engineering Co., Ltd. (Nanjing, Jiangsu, Çin) firmasından satın alınan zamanlanmış gebeli farelere doğurularak Wuxi Çocuk Hastanesi’nin hayvan deneyi tesisinde beslenmiştir. Fareler ve yavrular, bireysel havalandırmalı kafeslerde kontrollü koşullarda (20–25 °C, %30–70 bağıl nem ve 12 saat aydınlık/12 saat karanlık döngü) tutulmuş; standart kemirici maması ve su serbestçe sunulmuştur. Yavrular, planlanan deney prosedürleri hariç anneleriyle birlikte kalmıştır.
NEC’te Il1b bağılı enflamasyonun ve lipid metabolik düzenlemenin rollerini incelemek için yavrular dört gruba ayrılmıştır (grub başına n = 6; toplam N = 24): non-NEC + AAV9-shNC + araç madde, NEC + AAV9-shNC + araç madde, NEC + AAV9-shIl1b + araç madde ve NEC + AAV9-shNC + fenofibrat. Bireysel yavru deney birimi olarak alınmıştır. Yavrular, her yavruluk içinde bilgisayar tarafından üretilmiş rastgele bir sıralama kullanılarak ayrılmış; yavruluk dağılımı gruplar arasında dengelenmiş ve her iki cins de mümkün olduğunca dengeli şekilde dağıtılmıştır. Çalışma, cinsiyete göre katmanlaştırılmış karşılaştırmalar için yeterli güçlendirilmemiştir. Önceden belirlenmiş resmi bir güç hesabı yapılmamış; grup boyutu, önceki yayılmış neonat fare NEC çalışmalarına ve deney uygunluğuna dayanmaktadır. Histolojik NEC yaralanması birincil in vivo sonuç iken, bariyer, metabolik, biyokimyasal, morfometrik ve immünhistokimyasal ölçümler ikincil sonuçlardır. Ayırlanan tüm 24 yavru protokolü tamamlamış; hayvan kohortundan yerleştirme sonrası hiçbir çıkarma olmamıştır. Müdahaleleri uygulayan araştırmacılar grup ayrımlarından haberdardır. Doku örnekleri, histolojik kesitler ve görüntü dosyaları değerlendirmeden önce kodlanmış; histolojik skorlama ve görüntü kantitatif analizi grup ayrımlarından biyli iki araştırmacı tarafından gerçekleştirilmiş; moleküler ve biyokimyasal ölçümler kodlu örnekler kullanılarak yapılmıştır.
Canlı deneylerde Il1b baskılanması için, fare Il1b‘yi hedef alan shRNA ifade eden AAV9 (AAV9-shIl1b) ve buna karşılık gelen sahte kontrol vektörü (AAV9-shNC), OBiO Technology (Shanghai, Çin) firmasından temin edildi. shRNA hedef dizisi 5′-CCACCTCAATGGACAGAATAT-3′ olarak belirlendi. Doğumun 2. gününde (P2), yavrulara tek seferlik yüzeysel temporal ven içine AAV9-shIl1b veya AAV9-shNC, toplam 20 μL hacimde 2 × 10¹¹ vg/yavru dozunda enjekte edildi. 5 günlük transdüksiyon periyodundan sonra, NEC, değiştirilmiş formül besleme ve hipoksi protokolü kullanılarak P7 ile P10 arasında indükle edildi. Kontrol yavruları anneleriyle birlikte bırakıldı ve istenildiği kadar anne sütüyle beslendi. NEC grubu yavrulara, her gün tek seferlik 50 μL/g vücut ağırlığı oranında intragastrik gavage yoluyla Wyeth 1. faz bebek formülü ile Abbott Birth Puppy Formülünün 2:1 oranında karıştırıldığı taze hazırlanmış hipertonik formül verildi, ardından her gün iki seferlik 10 dakika boyunca %5 O₂/%95 N₂ ortamına maruz bırakıldı. Yavrular toparlandıktan sonra anneleriyle birleştirildi. Enterik bakteri inoculumu veya ekzojen LPS kullanılmadı. Fenofibrat, %0.5 sodyum karboksimetilselüloz içinde süspanze edildi ve ilk günlük NEC işleminden önce P7’den P10’a kadar her gün tek seferlik 50 mg/kg dozunda gavage yoluyla verildi. Geri kalan gruplara aynı programla eşit hacimde taşıyıcı (vehicle) verildi.
Hayvan refahı, P7’den P10’a kadar günde en az iki kez, ayrıca gavage ve hipoksi maruz kalışından hemen önce ve sonra değerlendirildi. Vücut ağırlığı, beslenme toleransı, abdominal distansiyon veya renk değişimi, spontane aktivite, düzeltme (righting) tepkisi, solunum, hidrasyon ve termoregülasyon izlendi. AAV9 uygulamasından ve hipoksi maruz kalışından sonra yavrular ısıtıldı ve normal cilt rengi, solunum ve spontane aktivite geri geldikten sonra anneleriyle birştirildi. İnsanca son noktalar (humane endpoints); kalıcı apne veya solunum zorluğu, düzeltme tepkisinin kaybı, belirgin tepkisizlik, beslenememe veya vücut ısını koruyamama, şiddetli abdominal distansiyon veya renk değişimi, ısıtma rağmen ilerleyen kötüleşme olarak belirlendi. Bu noktalardan herhangi birine ulaşan hayvanlar derhal eutanize edilecekti. Beklenmedik bir prosedüre bağlı adverse olay görülmedi ve hiçbir yavru insanca bir noktaya ulaşmadı.
P11’de, yavrular oksijen içinde 3% izofluran ile indüksiyon odasında pedal çekme refleksi kaybolana kadar 1 L/min hızda derin anestez altına alındı. Ardından eğitimli personel tarafından servikal dislokasyon yapıldı ve ölüm, kendiliğinden solunum ve kalp atımının süregelen şekilde kaybolması ile birlikte sabit göz bebekleriyle doğrulandı. Her bir yavrudan ileocecal birleşime komşe, standart bir terminal ileal segment toplandı. Bir bölüm histoloji ve immünhistokimya için %4 paraformaldehitte sabitlendi, komşu doku ise qRT-PCR, Western blotting ve biyokimyasal analizler için sıvı azotta anında dondurulup −80 °C’de saklandı. İleal Il1b baskılanması, deneysel uç noktada qRT-PCR ile doğrulandı. Tüm işlemler Wuxi Çocuk Hastanesi Kurumsal Hayvan Bakımı ve Kullanımı Komitesi’nin onayını aldı (No. WXCH2021-08-001).
2.8 Histoloji ve NEC yaralanma skorlaması
Sabitlenmiş ileal dokular dehidre edildi, parafin içine gömüldü, 4–5 μm kalınlığında kesitler alındı ve hematoksilin-eozin ile boyandı. Deneysel NEC’de distal ince bağırsağın en sık etkilenen bölgelerden biri olması nedeniyle histolozik yaralanma ileal kesitlerde değerlendirildi. Kesitler, deneysel gruplardan habersiz iki araştırmacı tarafından ışık mikroskobu altında incelendi. NEC histolozik yaralanması, yaygın olarak kullanılan Caplan skorlama sisteminden uyarlanmış 0–4 ölçeği ile skorlandı: 0, normal villus mimarisi; 1, yüzeysel epitelial hücre dökülmesi; 2, orta villus nekrozu; 3, tam villus nekrozu; ve 4, transmural nekrozu. 2 ve üzeri skolarlar NEC benzeri bağırsağ yaralanması ile uyumlu kabul edildi. Bu skorlama sistemi deneysel NEC modellerinde yaygın olarak kullanılır ve ilerleyen villus yaralanması, mukozal nekrozu ve transmural hasarın derecelendirilmesini sağlar. Villus boyu ve kript derinliği, iyi yönlenmiş ileal kesitlerde ölçüldü. Villus boyu, villus ucundan kript-villus birleşimine kadar; kript derinliği ise kript tabanından kript-villus birleşimine kadar ölçüldü. Her hayvan için en az be rastgele seçilmiş alan analiz edildi. Her bir hayvan için ortalam değeri bir biyolojik tekrar olarak kullanıldı.
2.9 İmunohistokimya
Parafin gömülü ileal kesitler ksilen içinde deparafinize edildi, kademe kademe etanol ile hidrate edildi ve sitrat tamponu kullanılarak antijen geri kazanımı uygulandı. Endojen peroksidaz aktivitesi %3 hidrojen peroksitle bloklandı, spesifik olmayan bağlanma ise %10 normal keçi serumuyla bloklandı. Kesitler, 4 °C’de gece boyu tavşan anti-Occludin anticisimi (Proteintech, 27260-1-AP; 1:500) ile inkübe edildi, ardından HRP eşleştirilmiş keçi anti-tavşan IgG (H+L) ikincil anticisimi (Abcam, ab205718; 1:2000) ile inkübe edildi. Boyama DAB ile görselleştirildi ve hematoksilin ile karşı boyandı. Görüntüler aynı mikroskop ayarları altında karşılaştırılabilir ileal bölgelerden çekildi. Bağırsak epitelinde Occludin immunoreaktivitesi ImageJ kullanılarak nicelendirildi. Her hayvan için en az beş rastgele seçilmiş alan incelendi. Ortalama optik yoğunluk, entegre optik yoğunluğun analiz edilen epitel alanına bölünmesiyle hesaplandı ve istatistiksel analiz için hayvan düzeyinde ortalama kullanıldı.
2.10 İstatistiksel analiz
Veriler ortalama ± SD olarak sunulmuştur. Tüm istatistiksel analizler GraphPad Prism ve R kullanılarak yapıldı. qPCR deneylerinde istatistiksel testler ΔCt değerleri üzerinde gerçekleştirildi; grafiksel sunum için ise 2−ΔΔCt yöntemiyle hesaplanan bağıl ekspresyon düzeyleri kullanıldı. İki gruplu karşılaştırmalarda, veriler normal dağıldığında eşlenmemiş iki uçlu Student’s t testi; aksi halde Mann-Whitney U testi uygulandı. Çok gruplu karşılaştırmalarda, normallik ve varyans homojenliği varsayımları sağlandığında tek yönlü ANOVA’nın ardından Tukey’s post hoc testi; bu varsayımlar sağlanmadığında ise Kruskal-Wallis testinin ardından Dunn’un çoklu karşılaştırma testi kullanıldı. GSVA skorları NEC ve cerrahi kontrol örnekleri arasında eşlenmemiş iki uçlu Welch’s t testiyle karşılaştırıldı. Normalleştirilmiş IL1B ekspresyonu ile yağ asidi metabolizması GSVA skorları arasındaki ilişki Pearson korelasyon analiziyle değerlendirildi. P < 0.05 istatistiksel açıdan anlamlı kabul edildi.
3 Bulgular
3.1
IL1B üst düzenlemesi, insan NEC transkriptomik profillerinde inflamatuvar aktivasyon ve lipid metabolik yol katılımıyla ilişkilidir
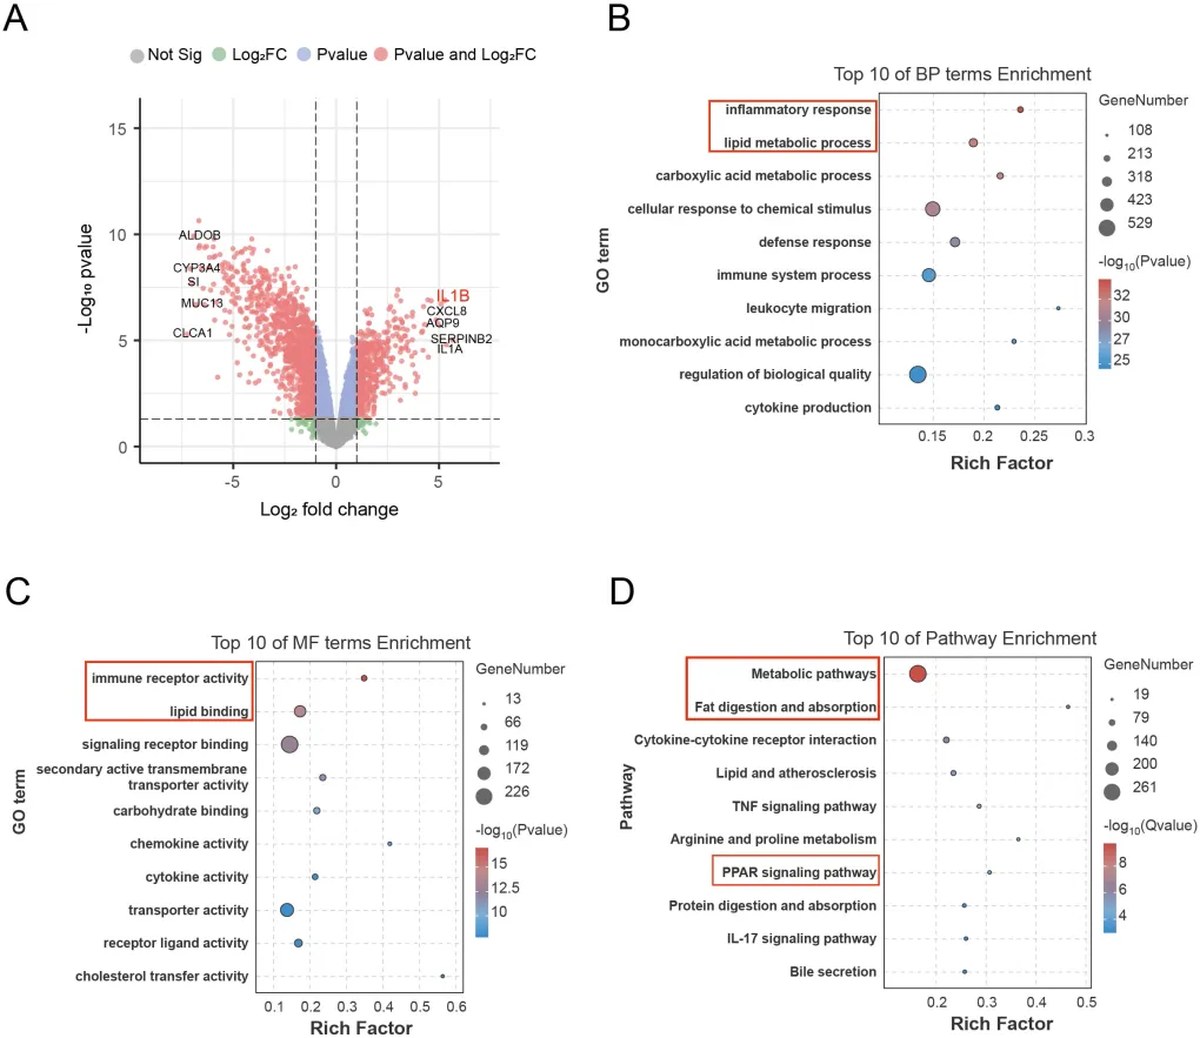
NEC ile ilişkili inflamatuvar ve metabolik yolları belirlemek için, NEC bağırsak örneklerini ve inflamatuar olmayan cerrahi kontrol örneklerini içeren insan bağırsak mikro dizisi veri seti GSE46619 analiz edildi. Farklı ekspresyon analizi, NEC dokusunda belirgin bir transkriptomik profille sonuçlandı. Volkan grafiğinde, IL1B, IL1A, CXCL8, AQP9 ve SERPINB2 dahil birkaç inflamatuvar ara madde NEC örneklerinde belirgin biçimde düzenlenirken; ALDOB, CYP3A4, SI, MUC13 ve CLCA1 dahil epitel farklılaşması ve metabolik işlevle ilişkili genler aşağı düzenlendi (Şekil 1A). Bu bulgular, NEC bağırsak dokusunun belirgin inflamatuvar aktivasyon ile birlikte epitel metabolik ve emilim imzalarının kaybıyla karakterize olduğunu gösteriyor.
Şekil 1
NEC ile ilişkili farklı ekspresyon gösteren genlerin işlevsel özelliklerini daha derinlemesine incelemek için GO ve yol zenginleştirme analizleri gerçekleştirildi. GO biyolojik süreç analizi, farklı ekspresyon gösteren genlerin inflamatuvar yanıt, lipid metabolik süreç, karboksilik asit metabolik süreç, hücreyi kimyasal uyarıya yanıt, savunu yanıtı, bağışıklık sistemi süreci, lökosit göçü ve sitokin üretimi içinde zenginleştiğini gösterdi (Şekil 1B). GO moleküler işlev analizi, bağışıklık reseptör aktivitesi, lipid bağlanması, sinyal reseptör bağlanması, kemokin aktivitesi, sitokin aktivitesi ve kolesterol taşıma aktivitesi zenginleşmesini daha da öne çıkardı (Şekil 1C). Yol zenginleştirme analizi, NEC ile ilişkili transkriptomik programlar arasında metabolik yollar, yağ sindirimi ve emilimi, sitokin-sitookin reseptör etkileşimi, TNF sinyal yolu, IL-17 sinyal yolu ve PPAR sinyal yolunu belirledi (Şekil 1D).
Over-representasyon zenginleştirme analizi, yol aktivasyonunu veya inhibisyonunu belirlemediğinden, bu bulgular inflamatuar ve lipid metabolizma yollarının NEC ile ilişkili transkripsiyonel yeniden düzenlenmeye dahil olduğunu gösteren kanıt olarak, yol yönelliğine dair doğrudan bir kanıt olarak değil, yorumlanmıştır. Birlikte, Şekil 1, IL1B-ilişkili inflamatuar ve lipid metabolizma/PPAR ile ilgili yolları, sonraki deneysel araştırmalar için aday süreçler olarak öne çıkarmıştır.
3.2 Yağ asidi metabolizması transkripsiyonel skorları NEC örneklerinde azalmış ve IL1B ifadesiyle ters ilişkilidir
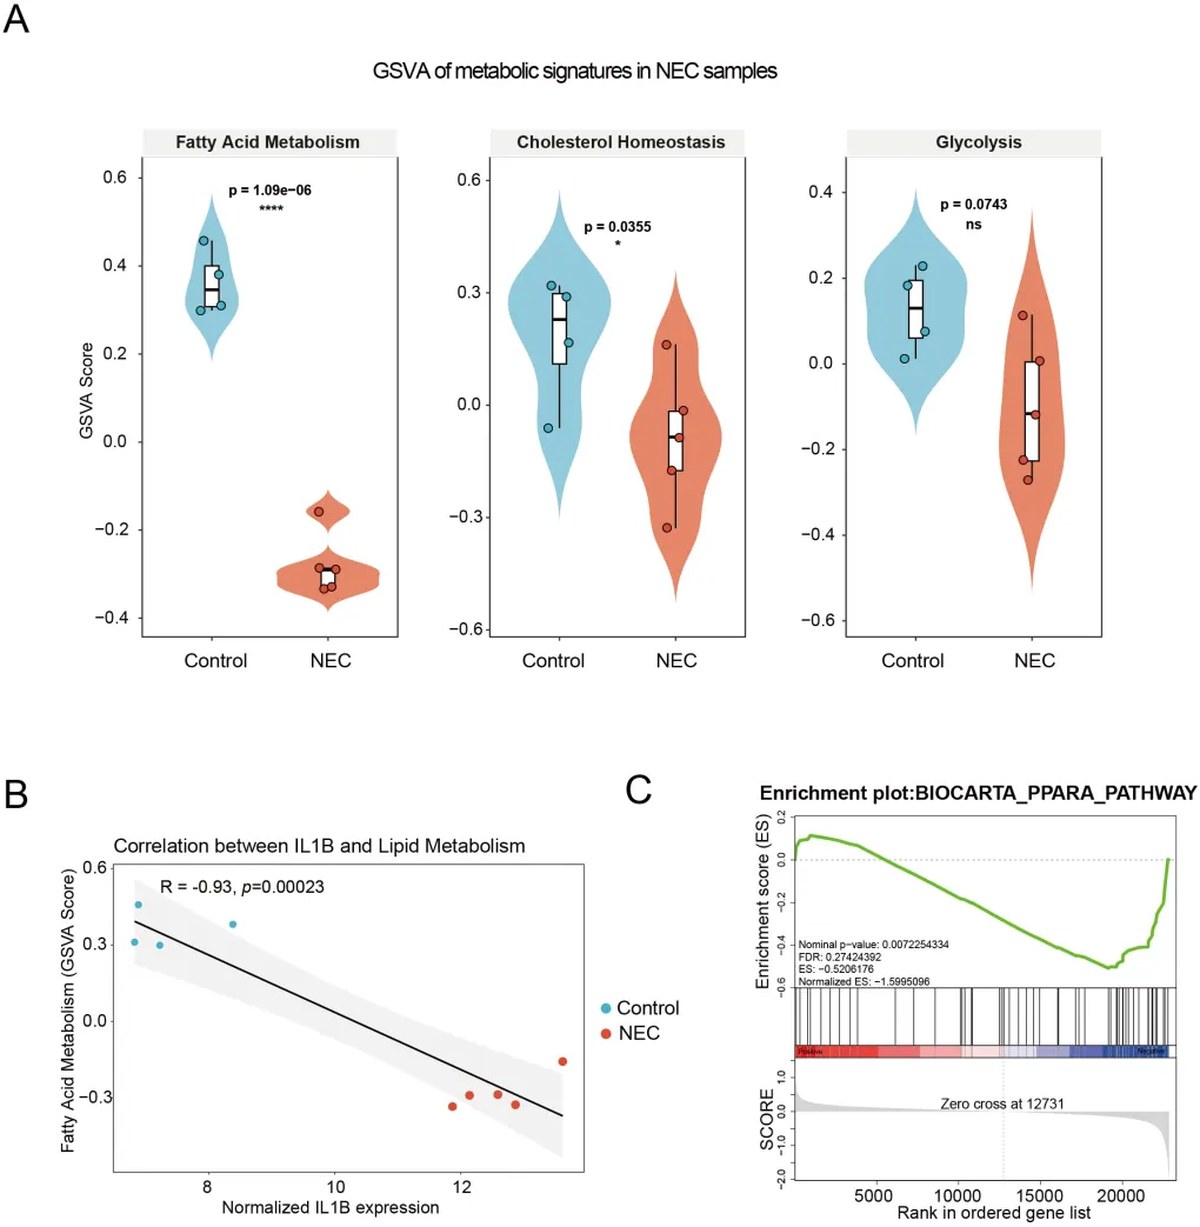
NEC örneklerinde hangi metabolik programların değiştiğini belirlemek için, yağ asidi metabolizması, kolesterol homeostazı ve glikolizi de dahil olmak üzere temsilî metabolik imzaların GSVA analizini gerçekleştirdik. Yağ asidi metabolizması puanları, Cerrahi-Kontrol örnekleriyle karşılaştırıldığında NEC örneklerinde belir şekilde azalmıştı (P = 1.09 × 10⁻⁶); bu bulgu, bu veri setinde yağ asidi-metabolizması gen imzasının daha düşük ifadesini gösteriyor (Şekil 2A). Kolesterol homeostazı puanları NEC örneklerinde anlamlı biçimde azalırken (P = 0.0355), glikoliz yalnızca istatistiksel olarak anlamlı olmayan bir düşüş eğilimi gösterdi (P = 0.0743) (Şekil 2A). Bu sonuçlar, değişmiş lipid metabolizması transkripsiyon imzalarının, özellikle de yağ asidi metabolizması imzasının, NEC bağırsak dokusunun öne çıkan bir metabolik özelliğini yansıtmiş olabileceğini düşündürdü. Ardından IL1B ifadesi ile yağ asidi metabolizması transkripsiyon puanı arasındaki ilişkiyi inceledik. Korelasyon analizi, tüm dokuz NEC ve cerrahi-kontrol örneği boyunca IL1B ifadesi ile yağ asidi metabolizması GSVA puanları arasında güçlü bir ters ilişki ortaya koydu (R = −0.93, P = 0.00023) (Şekil 2B). Bu korelasyon her iki grup boyunca hesaplandığı için, kısmen gruplar arası farkları yansıtmiş olabilir ve NEC örnekleri içinde karşılıklı bir ilişki kurmaz. Küçük örneklem boyutu ve doku düzeyindeki (bulk) tasarım ile birlikte bu durum, bulguu yalnızca IL1B ifadesi ile yağ asidi metabolizması transkripsiyon imzası arasındaki keşif amaçlı, hipotez üreten bir ilişki olarak sınırlar.
Şekil 2
NEC örneklerinde PPARα ile ilişkili sinyal yolunun yöneli olarak değişip değişmediğini daha iyi değerlendirmek için BIOCARTA_PPARA yolu kullanılarak GSEA gerçekleştirildi. Zenginleşme eğrisi, NEC örneklerinde PPARα yolunun olumsuz zenginleşme eğilimini gösterdi; normalize edilmiş zenginleşme skoru −1.5995 ve nominal P değeri 0.0072 olarak bulundu (Şekil 2C). Ancak FDR q değeri 0.2742 olduğundan, bu GSEA sonucu geleneksel FDR anlamlılığını karşılamayan, keşif amaçlı bir olumsuz zenginleşme eğilimi olarak değerlendirildi. Bu transkriptomik analizler bir bütün olarak, IL1B üst düzenlenmesi, daha düşük yağ asidi metabolizması transkriptomik skorları ve NEC’deki PPARα/CPT1A ile ilişkili metabolik bozukluk arasında potansiyel bir bağlantı olduğunu öne sürdü.
3.3
Il1b knockdown, IEC-6 hücrelerinde LPS kaynaklı epitel bariyeri bozukluğunu ve lipid metabolik bozukluğunu kısmen geri getirir
İşlevsel deneylerden önce, Il1b hedef alan üç bağımsız siRNA IEC-6 hücrelerinde test edildi. siIl1b-1, negatif kontrol siRNA grubuna kıyasla Il1b mRNA ifadesini anlamlı derecede azaltmadı (Ek Figure S1A). Buna karşılık, siIl1b-2 Il1b ifadesini anlamlı derecede azalttı (Ek Figure S1B) ve siIl1b-3 en güçlü knockdown etkisini gösterdi (Ek Figure S1C). Bu nedenle, siIl1b-3 fonksiyon kaybı deneylerinde kullanılmak üzere seçildi. İnflamatuar uyarının epitelyal bariyeri ve lipid metabolizması belirleyicilerini doğrudan etkileyip etkilemediğini belirlemek için IEC-6 hücreleri LPS veya rekombinant IL-1β ile muamele edildi. Her iki LPS ve IL-1β de kontrol hücrelerine kıyasla sıkı birleşim genlerinin mRNA ifadesini azalttı (Figürler 3A, B), bu da epitelyal bariyerle ilişkili gen ifadesinde bozulma olduğunu gösterdi. Eş zamanlı olarak, LPS ve IL-1β Cpt1a ve Ppara mRNA ifadesini azalttı, bu da inflamatuar uyar altında PPARα/CPT1A ile ilişkili lipid metabolizması belirleyicilerinin baskılanması olduğunu öne sürdü (Figürler 3C, D). LPS + siIl1b grubunda, Tjp1, Ocln, Cpt1a ve Ppara mRNA seviyeleri yalnızca LPS uygulandığında kıyasla kısmen geri getirildi (Figürler 3A–D), bu da içsel Il1b’nin LPS kaynaklı epitelyal disfonksiyonunda rol oynadığını destekledi.
Figür 3
Western blot analizi, LPS ve IL-1β’nin Occludin ve CPT1A protein seviyelerini azalttığını, Il1b knockdown’ının ise LPS ile muamele edilen IEC-6 hücrelerinde bu ifadenin kısmen geri geldiğini doğruladı (Şekil 3E). İşlevsel olarak, TEER değerleri LPS veya IL-1β uyarılması sonrasında azaldı ve bu, bozulan epitel bütünlüğünü gösteriyor; bu azalma LPS + siIl1b grubunda kısmen geri alındı (Şekil 3F). Ayrıca, LPS ve IL-1β MDA seviyelerini, toplam kolesterol içeriğini ve trigliserid içeriğini artırdı; bu da artan lipid peroksidasyonu ve lipid metabolik bozukluğu işaret ediyor (Şekil 3G–I). Il1b knockdown, LPS ile muamele edilen hücrelerde bu biyokimyasal göstergeleri azalttı (Şekil 3G–I). Bu bulgular, Il1b‘nin IEC-6 hücrelerinde LPS kaynaklı epitel bütünlüğü hasarı ve lipid-metabolik strese katkıda bulunduğunu gösteriyor.
3.4 Fenofibrat, LPS ve IL-1β ile uyarlanan IEC-6 hücrelerinde epitel bütünlüğü fonksiyonunu ve PPARα/CPT1A ile ilişkili metabolik göstergeleri kısmen geri getirir
Fenofibrat tedavisinin inflamatuar epitel hasarını azaltıp azaltamayacağını incelemek için, IEC-6 hücreleri LPS veya IL-1β uyarılmasından önce fenofibrat ile ön muamele edildi. LPS ve IL-1β, Tjp1 mRNA ifadesini azaltırken, fenofibrat hem LPS hem de IL-1β ile muamele edilen hücrelerde Tjp1 ifadesinin kısmen geri gelmesini sağladı (Şekil 4A). Benzer şekilde, Cpt1a ve Ppara mRNA seviyeleri inflamatuar uyarılma sonrasında azaldı ve fenofibrat tedavisinden sonra kısmen geri geldi (Şekil 4B, C).
Şekil 4
Western blot analizi, protein düzeyinde tutarlı değişiklikler gösterdi. Occludin ve CPT1A protein ifadesi LPS ve IL-1β ile uyarılan IEC-6 hücrelerinde azalırken, fenofibrat tedavisi Occludin ve CPT1A protein seviyelerini kısmen geri getirdi (Şekil 4D). Buna ek olarak, TEER değerleri LPS veya IL-1β ile azalmış ve fenofibrat tedavisinden sonra iyileşmiş (Şekil 4E). Bu sonuçlar, fenofibrat tedavisinin PPARα/CPT1A ile ilişkili işaretlerin ve sıkı birleşim bütünlüğündeki değişikliklerle paralel olarak inflamatör epitel disfonksiyonunu kısmen hafiflettiğini göstermektedir. Fenofibratin aynı zamanda PPARα’dan bağımsız antiinflamatör veya antioksidan etkiler de gösterebileceğinden, bu veriler PPARα ile ilişkili bir yanıtla tutarlı olmakla birlikte kesin bir PPARα bağımlılığını kanıtlamamaktadır.
3.5 Il1b knockdown ve fenofibrat, yenidoğan NEC farelerinde intestinal hasarı ve lipid metabolik bozukluğu hafifletmektedir
Il1b knockdown ve fenofibrat tedavisinin in vivo etkilerini incelemek için, yenidoğan fare NEC modeli kurduk ve bariyer, metabolik ve histolojik sonuçları değerlendirdik. Bariyer ve metabolik değişiklikleri değerlendirmeden önce, önce ileum dokusunda AAV9-shIl1b’nin in vivo knockdown verimliliğini doğruladık. NEC indüksiyonu, kontrol farelere kıyasla Il1b mRNA ifadesini belirgin şekilde artırırken, AAV9-shIl1b NEC farelerinde Il1b mRNA ifadesini anlamlı olarak azaltmıştır (Eksik Şekil S2A). Bu sonuçlar, Il1b ifadesinin in vivo etkin bir şekilde baskılanığını doğruladı ve AAV9-shIl1b girişim deneylerinin sonraki yorumlanmasını destekledi. Kontrol farelere kıyasla, NEC fareleri intestinal bariyer bozulmasını gösteren ileum Tjp1 ve Ocln mRNA ifadesinde belirgin azalmalar gösterdi (Şekiller 5A, B). NEC indüksiyonu ayrıca ileum Cpt1a ve Ppara
mRNA ekspresyonu, NEC bağırsak dokularında PPARα/CPT1A ilişkili lipid metabolik belirteçlerin baskılanmasını desteklemektedir (
Şekiller 5C, D
). Her iki AAV9-shIl1b ve fenofibrat da NEC grubuna kıyasla
Tjp1
Ocln
Cpt1a
Ppara
mRNA ekspresyonunu kısmen geri getirmiştir. qPCR sonuçlarıyla tutarlı olarak Western blot analizi, Occludin ve CPT1A protein seviyelerinin NEC ileal dokusunda azaldığını ve AAV9-shIl1b veya fenofibrat müdahalesinden sonra kısmen geri geldiğini göstermiştir (
Şekil 5E
). NEC farelerde ayrıca bağırsak dokusunda MDA seviyeleri, toplam kolesterol içeriği ve trigliserid içeriği artmış olup bu, artan lipid peroksidasyonu ve lipid metabolik bozukluğu göstermektedir (
Şekiller 5F–H
). Her iki AAV9-shIl1b ve fenofibrat da bu lipid ile ilgili biyokimyasal anormallikleri azaltmıştır (
Şekiller 5F–H
). İmunohistokimyasal boyama, Occludin ekspresyonunun NEC farelerinin bağırsak epitelinde belirgin şekilde azaldığını, oysa AAV9-shIl1b ve fenofibrat’ın epitelial Occludin boyama yoğunluğunu kısmen geri getirdiğini daha da göstermiştir (
Şekil 5I
). H&E boyamasıyla histolojik inceleme, NEC grubunda ciddi bağırsak epitelial bozulma, villus kısalması, krik yaralanması ve artmış NEC patolojik skorlarını göstermiştir (
Şekil 5J
). Her iki AAV9-shIl1b ve fenofibrat da villus uzunluğunu, krik derinliğini ve histolojik NEC yaralanma skorlarını iyileştirmiştir (
Şekil 5J
). Özetle, bu bulgular Il1b knockdown’ın ve fenofibrat tedavisinin her ikisinin de bağırsak yaralanmasını azalttığını ve PPARα/CPT1A ilişkili metabolik belirteçlerde iyileşmeler eşlik ettiğini, önerilen çalışma modeliyle tutarlı olduğunu göstermektedir.
Şekil 5
4 Tartışma
Nekrotizan enterokolit, uzun süredir prematüre bağırsağın prototipik inflamatuar hastalığı olarak görülmüştür; bu hastalıkta prematürite, formül beslenme, mikrobiyal disbiosis, hipoksi-iskemi ve aşırı içilimün tepkinin birleşmesi, epitel hasarı ve mukoza nekrozunu üretmektedir (Neu ve Walker, 2011; Hackam ve Sodhi, 2018; Hackam ve Sodhi, 2022). Bu çerçevede, TLR4-bağlı sinyallemenin, olgunlaşmamış bağırsağda epitel apoptozu, bozulmuş rejenerasyon, vasküler disfonksiyon ve inflamatuar amplifikasyonun merkezdeki üst düzey sürücüsü olarak konumlandırılmıştır (Yazji et al., 2013; Good et al., 2015). Bu çalışma, NEC ile ilişkili deneysel ortamlarda eşzamanlı inflamatuar, bariyer ve lipid metabolizması anormalliklerini bulmuştur. Birlikte, insan transkriptomik bulguları ve deneysel gözlemler, bu değişiklikler arasında doğrusal bir nedensel dizili kurmadan, IL-1β-bağlı inflamatuar tepki, değişmiş PPARα/CPT1A-bağlı metabolik belirteçler, lipid stresi ve epitel bariyer hasarını birbirine bağlayan çalıştırılabilir bir modeli desteklemektedir.
Çalışmanın merkezinde yer alan gözlem, nekrotizan enterokolitin bağırsak dokularının eşzamanlı inflamatuvar aktivasyon ve lipid metabolizması düzensizliğini sergilediğidir. İnsan transkriptomik veri setinde, IL1B, IL1A ve CXCL8, öne çıkan inflamatuvar ara araktörler arasında yer alırken, bu bulgu NEC’nin düzensiz mukozal bağışıklık manzarası ve pro-inflamatuvar sitokinlerin lokal birikimiyle karakterize olduğu yönündeki önceki bulgularla uyumludur (Olaloye ve ark., 2021; Wang ve ark., 2025). Bununla birlikte, zenginleştirme analizlerimiz lipid metabolik süreci, yağ sindirimi ve emilimi, metabolik yollar ve PPAR sinyal iletimi açısından da katılım ortaya koymuştur. Inflamatuvar ve metabolik imzaların bir arada bulunması, her iki sürecin de incelenmesi gerektiğini gösterir; karşılıklı nedensellik kurmaz. Özellikle GSVA, yağ asidi metabolizmasının glikoliz yerine, NEC örneklerindeki en belirgin azalmış metabolik imza olduğunu göstermiştir. Bu bulgu, küçük dokusal veri setinden elde edilmiş olup dolayısıyla hipotez üreten bir bulgu olarak değerlendirilmelidir; ancak formülle beslenen, metabolik olgunluğa ulaşmamış neonatal bağırsağın neden özellikle inflamatuvar yaralanmaya karşı hassas olduğunu anlamaya yönelik biyolojik açıdan makul bir giriş noktası sunar.
IL1B ekspresyonu ile yağ asidi metabolizmasının baskılanması arasındaki bağlantı, bu yorumu daha da desteklemektedir. IL-1β’nin bağırsak epitel hücre permeabilitesini NF-κB-, MLCK- ve occludin ile ilgili mekanizmalar yoluyla artırdığı bilinmekte; son çalışmalar ise IL-1β’nin occludin mRNA’sinin MIR200C-3p aracılı degradasyonu yoluyla epitel bariyerini bozabileceğini göstermiştir (Al-Sadi ve Ma, 2007; Rawat ve ark., 2020; Kaminsky ve ark., 2021). Verilerimiz, LPS ve yeniden oluşan IL-1β’nin IEC-6 hücrelerinde Tjp1 ve Ocln mRNA ekspresyonunu ve occludin protein bolluğunu azaltıp TEER’i düşürmesiyle bu yerleşik bariyer-bozucu etkilerle uyumludur. Aynı inflamatör uyarıcıların Ppara ve Cpt1a mRNA ekspresyonunu ve CPT1A protein bolluğunu azaltırken MDA, TC ve TG’yi artırdığına dair ek bulgu, IL-1β ilişkili epitel hasarının sıkı bağlantı birleşimlerinin çözülmesinden daha ötesine uzandığını öne sürmektedir. Bunun yerine, IL-1β; bozulmuş yağ asidi metabolik belirteci ekspresyonu ve artmış yağ peroksidasyonu ile karakterize edilen daha geniş bir epitel stres durumuyla eşleşiyor gibi görünmektedir.
İnsan NEC dokularındaki daha düşük kolesterol homeostasisi GSVA skorunun ve deney modellerinde ölçülen daha yüksek TC içeriğinin farklı ölçüm türlerini temsil ettiği görülmektedir. GSVA bir gen-ekspresyonu imzasını karakterize ederken, biyokimyasal analizler ölçülen numune hazırlığındaki lipid içeriğini kantitatif olarak belirler; ikisi de doğrudan metabolik akışı ölçmez. Dolayısıyla düşük bir kolesterol homeostasisi transkripsiyonel skoru, kaçınılmaz olarak düşük kolesterol içeriğini göstermez. Ölçümler ayrıca farklı türlerden ve deney ortamlarından elde edilmektedir. İnflamatör stres altında bozulmuş transkripsiyonel düzenleme ile artmış ölçülen kolesterol içeriği birlikte bulunabilir; ancak bu, belirli bir mekanizmanın modeller arası doğrulamasından ziyade olası bir yorumdur.
Bu iltihap-metabolizma bağlantısı, NEC patojenezinde özellikle önem taşır. Erik doğan bebeklerde enteral beslenme, yalnızca besinsel bir maruz kalma değil, aynı zamanda olgunlaşmamış bağırsağa yönelik metabolik bir zorlamadır. Deneysel çalışmalar, formül yağ bileşiminin NEC şiddetini etkileyebileceğini ve iyi sindirilemeyen yağın distal ileal epitelde birikmesinin yağ damlacığı birikimi, reaktif oksijen türleri oluşumu ve bağırsak iltihabını teşvik ettiğini göstermiştir (Sodhi ve ark., 2018; Alshaikh ve ark., 2021). Bulgularımız bu kavimle uyumlu olup, PPARα/CPT1A ile ilişkili metabolik bozulmaları, önerilen iltihap–metabolizma–bariyer modelinin aday bileşenleri olarak ortaya koymaktadır. PPARα, yağ alımı, yağ asidi oksidasyonu, mitokondriyal bioenerjetik ve iltihap kontrolüne dahil olan ligand-aktiveli bir nükleer reseptör iken, CPT1A uzun zincirli yağ asidlerinin β-oksidasyonu için mitokondriye girişini kontrol eder. Önceki çalışmalar, PPARα hedefli mitokondriyal bioenerjetiğin bağırsak epitel bariyeri onarımını teşvik edebileceğini göstermiş; bu da epitel metabolik yeterliliğinin iltihaplı streste mukozal toparlanma için gerekli olduğu daha geniş ilkeyi desteklemektedir (Crakes ve ark., 2019; Grabacka ve ark., 2022). Hipotezlerden biri, değişmiş PPARα/CPT1A ile ilişkili metabolizmanın yenidoğan epitelini lipid stresini detoksifikasyon, mitokondriyal enerji dengesini koruma ve sıkı bağlantı mimarisini koruma yeteneğini azaltmış olabileceğidir.
Müdahale deneyleri, Il1b knockdown’ın ve fenofibrat tedavisinin ayrı ayrı gözlemlenen yararlarını göstermektedir.
Il1b
knockdown, LPS kaynaklı
Tjp1
Ocln
Ppara
Cpt1a
mRNA ifadesindeki azalmaları kısmen geri döndürmüş ve daha düşük MDA, TC ve TG düzeyleriyle yansıtıldığı üzere lipid peroksidasyonunu ve lipid metabolik bozulmalarını azaltmıştır; tutarlı şekilde, AAV9-shIl1b yenidoğan NEC farelerinde ileal sıkı bağlantı işaretçilerini, PPARα/CPT1A ile ilişkili metabolik işaretçileri, Occludin immunostain’ini ve histolojik hasarı iyileştirmiştir. Paralel olarak, fenofibrat epitel bariyeri ve metabolik işaretçileri
in vitro
ve NEC ile ilişkili ileal hasarı azaltmıştır
in vivo
önceden ortaya konan kanıtlarla uyumlu olarak, PPARα aktivasyonunun intestinal lipid işlenmesini ve epitel bariyeri iyileşmesini desteklediği gösterilmektedir (Grabacka ve ark., 2022; Hackam ve Sodhi, 2022). Bu bulgular, NEC’de IL-1β ile ilişkili iltihaplanma, lipid metabolik bozulmaları ve epitel bariyeri hasarı arasındaki bağlantıyı kuran çalışmaya dayalı bir modeli desteklemektedir. Ayrı ayrı gözlemlenen Il1b knockdown ve fenofiratbe tedavisinin getirdiği yararlar iki potansiyel müdahale yaklaşımını işaret etmekte, ancak doğrusal bir IL-1β–PPARα nedensellik yolu kurmamakta veya birleştirilmiş kullanımlarının ek yarar sağladığını göstermemektedir. Bu iki yaklaşımın tamamlayıcı mı yoksa toplayıcı mı etkiler sunduğu hâlâ denenmemiş bir hipotezdir. Birkaç sınırlama kabul edilmelidir. Sıkı bağlantı ölçümleri, IEC-6 hücrelerinde seçili belirteçler ve TEER ile sınırlıydı. Claudin-2 ve claudin-15 ölçülmediğinden, bu sonuçlar paraselüler iyon taşınması veya besin emiliminin ne kadar seçici biçimde etkilendiğini göstermemektedir. RNA bütünlüğü doğrudan değerlendirilmedi ve spektrofotometrik saflık ölçümleri RNA bozulmasını eklememekte; bu da qPCR sonuçlarının yorumlanmasını sınırlamaktadır. Hücre kültürü deneylerindeki ve hayvan Western blot analizlerindeki bağımsız tekrar sayısının az olması, etki tahminlerinin kesinliğini ve biyolojik değişkenliğin değerlendirilmesini sınırlamakta, küçük etkilere duygunluğu azaltabilir. Bu nedenle bulgular, incelenen deney modelleri çerçevesinde dikkatlice yorumlanmalıdır. İnsan transkptomik analizi, epitel-özlü metabolik değişiklikleri bağışıklık hücresi infiltrasyonundan, nekrozdan veya numune farklarından ayıramayan küçük bir halka açık doku veri setine dayanmaktaydı. BIOCARTA_PPARA GSEA, nominal biçimde zenginleşme göstermiş, ancak geleneksel FDR anlamlılığına ulaşmamıştır. Ayrıca, PPARα/CPT1A ifadesi ve lipid stess belirteçleri ölçülmüş olsa da, yağ asidi oksidasyon akışı, mitokondriyal solunum, ATP üretimi ve lipid damlacıkları dinamiği doğrudan değerlendirilmemiştir. Fenofiratbe çok yönlü anti-inflamatuar ve antioksidan etkiler sergilemektedir; bu nedenle geçerli bulgular, PPARα ile ilişkili bir yanıtla uyumlu olmakla birlikte, kesin PPARα
bakımla ilişkilidir. AAV9-shIl1b aracılı Il1b söndürülmesi, ileum dokusunda mRNA düzeyinde doğrulanmış olsa da, protein düzeyinde doğrulama ve hücre türüne özgü lokalizasyon, in vivo söndürme yorumunu daha da güçlendirecektir. Son olarak, IEC-6 hücreleri sıçan kaynaklı bağırsak epitel hücreleri olurken, in vivo doğrulama yeni doğan farelerde gerçekleştirilmiştir; bu nedenle bu bulgular insan NEC’ye çıkarılırken tür farkları ve gelişimsel olgunlaşmamışlık dikkate alınmalıdır. Epitel özgü PPARα işlev kaybı modelleri, metabolik akış analizleri, yeni doğan bağırsak organoidleri, alan transkriptomiği ve human NEC dokuları kullanılarak yapılacak geleceki çalışmalar, bu yolak hücre özgünlüğünü ve çevirim relevansını daha kesin biçimde tanımlamaya önemli katkı sağlayacaktır. İndükleme yeteneğine sahip yeni doğan fare modeli, akut formül/hipoksi ilişkili bağırsak hasarını yeniden üretse de, insan erken doğumu veya NEC’in tam klinik heterojenliğini yeniden üretmez. Gelişimsel evre, formül bileşimi, maternal ayrılma, mikrobiyal maruz kalma ve yükseme yoğunluğundaki farklar, hasar şiddetini etkileyebilir ve laboratuvarlar arası doğrudan çevirimi veya karşılaştırmayı sınırlayabilir.
Özetle, human NEC transkriptomik analizi, azalmış yağ asidi metabolizması transkriptomik imzalarıyla eşlik eden inflamatuvar aktivasyon ortaya koymuştur. Deneysel modellerde Il1b söndürülmesi ve fenofibrat tedavisi, epitel bariyer hasarını ve lipid ile ilgili anormallikleri her ikisi de hafifletmiştir. Bu bulgular, IL-1β ilişkili inflamatuvar süreç, değişmiş PPARα/CPT1A ilişkili metabolik belirteçler ve NEC’de bariyer hasarını birbirine bağlayan çalışır bir modeli desteklemektedir. Bu değişikliklerin nedensel sıralaması, PPARα gereksinimi ve birleşik müdahalenin potansiyel yararı, henüz ortaya konmalıdır.
Açıklamalar
Veri erişilebilirliği açıklaması
Bu çalışmada analiz edilen insan transkriptomik veri seti, NCBI Gene Expression Omnibus (GEO) altında GSE46619 erişim numarasıyla halka açık biçimde mevcuttur (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE46619). Deneyimsel sonuçlar makalede ve Ek Malzeme altında bildirilmiştir. Deneyimsel veriyle ilgili ek sorgular ilgili yazar’a yöneltilebilir.
Ahlak beyanı
Çalışmanın insanlarla yürütülmesi, yerel mevzuat ve kurumsal gereklilikler doğrultusunda etik onay gerektirmemiştir. Ulusal mevzuat ve kurumsal gerelilikler çerçevesinde, katılımcıların veya katılımcıların yasal velilerinin/yakınlarının bu çalışmaya katılımına ilişkin yazılı rıza alınması gerekli görülmemiştir. Hayvan çalışması, Çin Jiangsu eyaleti Wuxi şehrindeki Wuxi Children’s Hospital (Jiangnan University’ye bağlı Çocuk Hastanesi) Kurumsal Hayvan Bakımı ve Kullanımı Komitesi tarafından onaylanmıştır. Onay No.: WXCH2021-08-001. Çalışma, yerel mevzuat ve kurumsal gerelilikler doğrultusunda yürütülmüştür. İnsan verisi bileşeni yalnızca halka açık GSE46619 GEO veri setinin ikincil analizinden oluşmakta ve yeni katılımcı alımı yapılmamıştır.
Yazar katkıları
YZha: Kavramsal tasarım, Biçimsel analiz, Soruşturma, Yöntem, Yazım – taslak. YZho: Veri düzenlemesi, Soruşturma, Yazım – taslak. RY: Soruşturma, Doğrulama, Yazım – taslak. YM: Proje yönetimi, Gözetim, Yazım – inceleme & düzenleme.
Finansman
Yazar(lar), bu çalışma ve/veya yayımı için herhangi bir finansal destek alınmadığını beyan etmiştir.
Çıkar çatışması
Yazar(lar), bu çalışmanın ticari veya olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir finansal ilişki olmadan yürütüldüğünü beyan etmiştir.
Arkadaş değerlendirmesi sırasında, FY hakemi; editörle ilgilenilen yazar YZ ile ortak bir bağlılığa sahip olduğunu beyan etmiştir.
Üretken yapay zeka beyanı
Yazar(lar), bu makalenin oluşturulmasında üretken yapay zekanın kullanıldığını beyan etmiştir. İngilizce dil düzenlemesi için OpenAI Codex (GPT-5 tabanlı model, OpenAI; erişim Ağustos 2026; https://openai.com) kullanılmıştır. Çalışma verilerinin üretilmesi, analiz edilmesi veya yorumlanması için veya bilimsel figürlerin oluşturulması/değiştirilmesi için kullanılmamıştır. Yazarlar tüm bilimsel içeriği, analizleri, yorumları, atıfları ve son metni gözden geçirmiş ve doğrulamıştır; makale için tam sorumluluk üstlenmektedirler.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text) Frontiers tarafından yapay zekanın desteğiyle oluşturulmuş ve mümkün olduğunca yazarların gözden geçirmesini de içeren makul çabalarla doğruluğunun sağlanması için uğraş verilmiştir. Herhangi bir sorunu tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncının notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve bağlı oldukları kuruluşların, ya da yayıncının, editörlerin ve hakemlerin görüşlerini mutlaka yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ekleme materyali
Bu makalenin Ekleme Materyaline çevrimiçi olarak şu adresten ulaşılabilir: https://www.frontiersin.org/articles/10.3389/fphys.2026.1979880/full#supplementary-material
Ekleme Dosyası 1
Ekleme Figürleri S1 ve S2, IEC-6 hücrelerinde ve yenidoğan fare ince bağırsağında Il1b knockedown’ının (baskılanmasının) doğrulamasını göstermekte; Ekleme Tabloları S1 ve S2 ise sıçan ve fare qPCR primer dizilerini listelemektedir.
Ekleme Dosyası 2
Figürler 3– 5 için mevcut Western blot kaynak görüntüleri.
Kısaltmalar
AAV, adeno-associated virus; ANOVA, varyans analizi; CPT1A, karnitin palmitoiltransferaz 1A; FDR, sahte keşif oranı; GSEA, gen seti zenginleştirme analizi; GSVA, gen seti değişim analizi; IL-1β, interlökin-1 beta; LPS, lipopolisakkarit; MDA, malondialdehit; NEC, nekrotizan enterokolit; PPARα, peroksizom proliferatörü aktive eden reseptor alfa; qRT-PCR, kantitatif gerçek zamanlı polimeraz zincir reaksiyonu; SIP, spontan bağırsak perforasyonu; TC, toplam kolesterol; TEER, transepitelyel elektrik direnci; TG, trigliserit; TLR4, Toll benzeri reseptor 4; ZO-1, zonula occludens-1.
-
Al-Sadi R. Ma T. Y. (2007).
IL-1beta, bağırsak epitelyal sıkı bağlantı geçirgenliğini artırır. J. Immunol.178, 4641–4649. doi: 10.4049/jimmunol.178.7.4641- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Alshaikh B. N. Reyes Loredo A. Knauff M. Momin S. Moossavi S. (2021).
Beslenmedeki yağların nekrotizan enterokolitin gelişimi ve önlenmesindeki rolü. Nutrients14, 145. doi: 10.3390/nu14010145- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Chan K. Y. Y. Leung K. T. Tam Y. H. Lam H. S. Cheung H. M. Ma T. P. Y. ve ark. (2014).
İnsan bağırsak dokularında nekrotizan enterokolit ile spontan bağırsak perforasyonu arasındaki genom çapında ekspresyon profilleri: fonksiyonel yolların düzensizliği. Ann. Surg.260, 1128–1137. doi: 10.1097/SLA.0000000000000374- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Crakes K. R. Pires J. Quach N. Ellis-Reis R. E. Greathouse R. Chittum K. A. ve ark. (2021).
Fenofibrat, diyabet mellituslu köpeklerde konak-mikrop arayüzünde PPARα hedefli bağırsak epitelyal bariyerinin toparlanmasını teşvik eder. Sci. Rep.11, 13454. doi: 10.1038/s41598-021-92966-7- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Crakes K, Santos Rocha C, Grishina I, Hirao L. A, Napoli E, Gaulke C. A ve ark. (2019).
PPARα hedefli mitokondriyal bioenerjetik, SIV enfeksiyonu sırasında konak-mikrop etkileşimi barsak bariyerlerinin onarımını sağlar. Proc. Natl. Acad. Sci. U.S.A.116, 24819–24829. doi: 10.1073/pnas.1908977116- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Duchon J, Barbian M. E, Denning P. W. (2021).
Necrotizing enterocolitis. Clin. Perinatol48, 229–250. doi: 10.1016/j.clp.2021.03.002- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Gershner G. H, Calkins C, Golubkova A, Schlegel C, Massahi A, Lerner M ve ark. (2025).
GPX enzimlerinin, lipid profillerinin demir birikimi necrotizing enterocolitis içindeki rolü. Int. J. Mol. Sci.26, 6077. doi: 10.3390/ijms26136077- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Good M, Sodhi C. P, Egan C. E, Afrazi A, Jia H, Yamaguchi Y ve ark. (2015).
Anne sütü, epidermal growth factor reseptörünün aktivasyonu aracılığıyla bağırsak epitelinde Toll-like receptor 4’ün inhibisyonu aracılığıyla necrotizing enterocolitis gelişimine karşı korur. Mucosal Immunol.8, 1166–1179. doi: 10.1038/mi.2015.30- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Grabacka M, Płonka P. M, Pierzalska M. (2022).
PPARα’nın mikrobiyota ile etkileşim, bağırsak bağışıklığı, metabolizma ve geçirgenlik açısından bağırsak fizyolojisini düzenlemesi. Int. J. Mol. Sci.23, 14156. doi: 10.3390/ijms232214156- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Hackam D. J., Sodhi C. P. (2018). Toll-like receptor-mediated intestinal inflammatory imbalance in the pathogenesis of necrotizing enterocolitis. Cell. Mol. Gastroenterol. Hepatol. 6, 229–238.e1. doi: 10.1016/j.jcmgh.2018.04.001
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Hackam D. J., Sodhi C. P. (2022). Bench to bedside – new insights into the pathogenesis of necrotizing enterocolitis. Nat. Rev. Gastroenterol. Hepatol. 19, 468–479. doi: 10.1038/s41575-022-00594-x
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Kaminsky L. W., Al-Sadi R., Ma T. Y. (2021). IL-1β and the intestinal epithelial tight junction barrier. Front. Immunol. 12, 767456. doi: 10.3389/fimmu.2021.767456
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Kuo W.-T., Odenwald M. A., Turner J. R., Zuo L. (2022). Tight junction proteins occludin and ZO-1 as regulators of epithelial proliferation and survival. Ann. N. Y. Acad. Sci. 1514, 21–33. doi: 10.1111/nyas.14798
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Neu J., Walker W. A. (2011). Necrotizing enterocolitis. N. Engl. J. Med. 364, 255–264. doi: 10.1056/nejmra1005408
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Niño D. F., Sodhi C. P., Hackam D. J. (2016). Necrotizing enterocolitis: new insights into pathogenesis and mechanisms. Nat. Rev. Gastroenterol. Hepatol. 13, 590–600. doi: 10.1038/nrgastro.2016.119
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Olaloye O., Liu P., Toothaker J. M., McCourt B. T., McCourt C. C., Xiao J. et al. (2021). CD16+CD163+ monositeler prematbe bebeklerde necrotizing enterocolitis sırasında iltihaplanma odaklarına göç eder. J. Exp. Med. 218, e20200344. doi: 10.1084/jem.20200344
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Rawat M., Nighot M., Al-Sadi R., Gupta Y., Viszwapriya D., Yochum G. et al. (2020). IL1B, MIR200C-3p’yi yukarı düzenleyerek okcludin mRNA’sını parçalayarak bağırsak sıkı bağlantı geçirgenliğini artırır. Gastroenterology 159, 1375–1389. doi: 10.1053/j.gastro.2020.06.038
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Selvkumar D., Evans D., Coyte K. Z., McLaughlin J., Brass A., Hancock L. et al. (2022). Sağlıklı durumda ve iltihaplanma sırasında bağırsak mikrobiyotasının gelişimi ve işlevinin anlaşılması. Frontline Gastroenterol. 13, e13–e21. doi: 10.1136/flgastro-2022-102119
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Sodhi C. P., Fulton W. B., Good M.,urma M., Das T., Lai C. et al. (2018). Bebek formüllerindeki yağ bileşimi necrotising enterocolitis’in şiddetine katkıda bulunur. Br. J. Nutr. 120, 665–680. doi: 10.1017/s0007114518001836
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Song S., Attia R. R., Connaughton S., Niesen M. I., Ness G. C., Elam M. B. et al. (2010). Perozom proliferatör aktive reseptör alfa (PPARalfa) ve PPAR gamma koaktivator (PGC-1alfa), karntin palmitoiltransferase IA’yı (CPT-1A) bağımsız gen elemanları aracılığıyla indükler. Mol. Cell. Endocrinol. 325, 54–63. doi: 10.1016/j.mce.2010.05.019
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Turner J. R. (2009). Bağırsak mukozal bariyer işlevi sağlık ve hastalıkta. Nat. Rev. Immunol. 9, 799–809. doi: 10.1038/nri2653
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Wada M, Tamamura A, Takahashi N, Tsukita S. (2013). Claudin 2 ve 15’in farelerde kaybedilmesi, hücrelerarası Na+ akışı ve bağırsakta besin taşınmasında kusurlara yol açar ve açlıktan ölüme neden olur. Gastroenterology 144, 369–380. doi: 10.1053/j.gastro.2012.10.035
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Wang J, Qu M, Qiu A, Yang L, Xu H, Yu S. ve ark. (2025). Neonatal nekrotizan enterokolitte tanısal biyomarker olarak değerlendirilen ve potansiyeli değerlendirilen TRAF6 ve IL-8’in kantitatif proteomik analizi. Mol. Biotechnol. 67, 1109–1121. doi: 10.1007/s12033-024-01111-y
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
-
Yazji I, Sodhi C. P, Lee E. K, Good M, Egan C. E, Afrazi A. ve ark. (2013). Endotelyal TLR4 aktivasyonu, eNOS-NO-nitrit sinyallemesi aracılığıyla nekrotizan enterokolitte bağırsak mikrodöngüsel perfüzyonunu bozar. Proc. Natl. Acad. Sci. U.S.A. 110, 9451–9456. doi: 10.1073/pnas.1219997110
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede referansı görüntüle
Özet
Anhtar kelimeler
CPT1A, fenofibrat, interleukin-1 beta, bağırsak epitel bariyeri, lipid metabolizması, nekrotizan enterokolit, PPAR alfa
Başvuru
Zhang Y, Zhou Y, Yu R ve Mei Y (2026) IL-1β ile ilişkili inflamasyon, lipid metabolik değişiklikleri ve epitel bariyeri hasarı nekrotizan enterokolitte: fenofibrat ile kısmi koruma. Front. Physiol. 17:1979880. doi: 10.3389/fphys.2026.1979880
Müracat tarihi
27 Ağustos 2026
Güncellenme tarihi
10 Ekim 2026
Kabul tarihi
14 Ekim 2026
Yayınlanma tarihi
10 Kasım 2026
17 – 2026
Robert Schierwagen, Münster Üniversite Hastanesi, Almanya
Fuqiang Yuan, Wuxi Çocuk Hastanesi, Çin
Francemilson Goulart Da Silva, São Paulo Üniversitesi, Brezilya
© 2026 Zhang, Zhou, Yu ve Mei.
Bu makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında açık erişimli olarak dağıtılmıştır. Yerleşik akademik uygulamalar doğrultusunda, orijinal yazar(lar)ın ve telif hakkı sahibinin(lerin) belirtilmesi ve bu dergideki orijinal yayının atıf edilmesi şartıyla, diğer forumlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izinlidir.
*İletişim: Yingzi Mei, meizizi2003@163.com
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve bağlı oldukları kuruluşların, ya da yayıncının, editörlerin ve hakemlerin görüşlerini kesin olarak yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.