Orijinal Araştırma Makalesi
Front. Oncol., 13 Kasım 2026
Bölüm: Kanser Moleküler Hedefleri ve Terapötikleri
Cilt 16 – 2026 | https://doi.org/10.3389/fonc.2026.1952896
- SW
Shuxia Wang 1†
- PF
Peng Fu 2†
- QZ
- FY
Fan Yang 2
- ZW
Zhanjie Wei 2*
-
1. Radyoloji Bölümü, Wuhan Merkez Hastanesi, Tongji Tıp Fakültesi, Huazhong Bilim ve Teknoloji Üniversitesi, Wuhan, Çin
-
2. Tiroid ve Meme Cerrahisi Bölümü, Wuhan Merkez Hastanesi, Tongji Tıp Fakültesi, Huazhong Bilim ve Teknoloji Üniversitesi, Wuhan, Çin
Makale Metrikleri
Özet
Arka Plan:
Go-Ichi-Ni-San kompleks alt birim 4 (GINS4), ferroptozu düzenlemede rol oynadığı bildirilmiş olsa da, tiroid kanseriyle ilgili kanıtlar sınırlıdır. Bu çalışma, GINS4’ün tiroid kanserinde ferroptoz üzerindeki etkilerini ve altında yatan mekanizmaları incelemeyi amaçlamıştır.
Yöntemler:
İnsan tiroid kanseri hücre hatları TPC-1 ve IHH4, GINS4-spesifik siRNA ile transfekte edilmiştir. Ferroptoz inhibisyonu ve p53 yolu doğrulaması sırasıyla ferrostatin-1 (Ferr-1) ve pifithrin-α (PFT-α) kullanılarak gerçekleştirilmiştir. Protein-protein etkileşimi (PPI) ağı analizi, GINS4 ile ferroptozla ilişkili belirteçler arasındaki potansiyel ilişkiyi incelemek amacıyla yapılmıştır.
Sonuçlar:
GINS4 knockdown, tiroid kanser hücre hatlarında artmış reaktif oksijen türleri (ROS), malondialdehit (MDA) ve Fe2+ seviyeleri ile azalmış mitokondriyal membran potansiyeli (MMP) ile yansıtıldığı gibi ferroptozisi teşvik etti. Ferr-1 eklenmesi, tiroid kanser hücre hatlarında GINS4 knockdown’ın ferroptozise etkilerini tersine çevirdi ve bu da GINS4 knockdown’a bağlı hücre ölümünün büyük ölçüde ferroptozise attributable olduğunu öne sürdü. PPI ağ analizi, p53’ü GINS4 ilişkili ferroptosis ağında potansiyel bir hub molekülü olarak belirledi; SLC7A11 ve GPX4 ise ana ferroptozis ile ilişkili aşağı yönlü proteinlerdi. Western blot analizi, GINS4 knockdown’ın tiroid kanser hücre hatlarında p53’ü artırdığını ve SLC7A11 ile GPX4’ü azalttığını doğruladı. PFT-α, tiroid kanser hücre hatlarında GINS4 knockdown’ın p53/SLC7A11/GPX4 yolu ve ferroptozise etkilerini tersine çevirdi; bu da p53/SLC7A11/GPX4 yolunun GINS4 knockdown ile aracılı ferroptozise katkıda bulunabileceğini gösterdi.
Sonuç:
GINS4 knockdown, tiroid kanser hücre hatlarında p53/SLC7A11/GPX4 yolu üzerinden ferroptozisi kolaylaştırır.
1 Giriş
Thyroid cancer, en yaygın endokrin malignitedir; 2024 yılında dünya çapında tahmini 959.281 vaka ve 48.070 ölümle sonuçlanmıştır ( 1 ). Throid kanserin tedavisinde kaydedilen önemli ilerlemelere rağmen, hastaların bir kısmında yineleme, metastas ve ilaç direnci gelişmekte ve bu da olumsuz klinik sonuçlara yol açmaktadır ( 2 – 4 ). Dolayısıyla, yeni moleküler mekanizmaların belirlenmesi, tiroid kanserin yönetiminin iyileştirilmesi açısından temel önem taşımaktadır ( 5 ). Ferroptosis, ölümcül membran lipid peroksidasyonuyla karakterize, demir bağımlı düzenli hücre ölümünün bir biçimidir ( 6 – 8 ). Son araştırmalar, ferroptozisin tiroid kanserin başlangıcı, ilerlemesi ve tedavi yanıtındaki rollerini aydınlatmıştır ( 9 – 11 ). Bu nedenle, ferroptozisin arkasındaki moleküler mekanizmaların aydınlatılması, tiroid kanser biyolojisine ve terapötik gelişime yeni içgörüler sağlayabilir.
Go-Ichi-Ni-San kompleks alt birim 4 (GINS4), DNA replikasyonu ve hücre döngüsü ilerlemesine dahil olan GINS kompleksinin çekirdek bileşeninden biri olup tümör patolojisi ve ilerlemesi ile ilişkilidir ( 12 – 14 ). Önemli olan, önceki çalışmaların GINS4’ün kanserde ferroptozis’in bir düzenleyicisi olarak görev yapmış olabileceğini de ortaya koymasıdır ( 14 , 15 ). Örneğin, Chen ve arkadaşları, GINS4’ün eksikliğinin Snail aracılı p53 asetilasyon düzenlemesi yoluyla p53 kararlılığını artırarak adenokarsinom (LUAD) hücrelerinde ferroptozisi teşvik ettiğini gösterdi ( 15 ). Benzer şekilde, Yao ve arkadaşları, GINS4’ün knockdown’ının DNA polimeraz epsilon alt birim 2 (POLE2)/fosfoinozitid 3-kinaz (PI3K)/protein kinaz B (AKT) yolunu bozarak hepatosellüler karsinom (HCC) hücrelerinde ferroptozisi teşvik ettiğini bildirdi ( 14 ). Ancak, GINS4’ün kanserde ferroptozise katılımı iyi karakterize edilememiştir.
Bu nedenle, bu çalışma GINS4’ün tiroid kanseri hücre hatlarında ferroptozisi düzenlemedeki rolünü ve altında yatan mekanizmaları araştırmayı amaçladı.
2 Materyal ve yöntemler
2.1 GINS4 ifadesi ve hayatta kalma analizleri
GINS4’ün tiroid karsinom ve normal tiroid dokusundaki ifadesi, TCGA ve GTEx verilerine dayanan Gen İfade Profillemesi İnteraktif Analiz (GEPIA) veritabanı kullanılarak analiz edildi. Genel hayatta kalma (OS) ve hastalıksız hayatta kalma (DFS) analizleri yapıldı. Hastalar, ortanca ifade düzeyine göre yüksek ve düşük GINS4-ifadesi gruplarına ayrıldı.
2.2 Hücre hatları ve GINS4 ifadesi
İnsan tiroid kanseri hücre hatları TPC-1 ve IHH4 ile birlikte immortalize edilmiş insan normal tiroid hücre hattı Nthy-ori 3-1, ticari bir hücre deposundan (Cellverse, Çin) temin edildi ve RPMI-1640 Ortağı (Servicebio, Çin) içinde kültüre edildi. Ortağa %10 fetüs bovin serumu ve %1 penisilin-streptamisin (Servicebio, Çin) eklendi ve hücreler 37 °C ve %5 CO2 altında kültüre edildi. GINS4 protein ifadesi Nthy-ori 3-1, IHH4 ve TPC-1 hücrelerinde Western blot ile değerlendirildi.
2.3 GINS4 knockdown
TPC-1 ve IHH4 hücreleri ekilip %50 konflansa kadar kültüre edildi. GINS4 knockdown işlemi, GINS4-spesifik siRNA (GINS4-KD) (duyarlı zincir, GCCUCUCGCCGGAAGAGUUTT, duyarsız zincir, AACUCUUCCGGCGAGAGGCTT) siRNA-Mate Plus Transfection Kit (GenePharma, Çin) kullanılarak kitin protokolüne uygun şekilde transfeksiyon ile gerçekleştirildi; kontrol grubunda negatif kontrol siRNA (Ctrl-KD) kullanıldı. Transaksiyonu yapılmayan hücreler boş grup olarak alındı. 48 saatin ardından GINS4 knockdown verimliliği western blot analizi ile doğrulandı. Reaktif oksijen türleri (ROS), malondialdehit (MDA), mitokondriyal membran potansiyeli (MMP), Fe2+ ve hücre canlılığı ölçüldü.
2.4 GINS4 aşırı ekspresyonu
TPC-1 ve IHH4 hücreleri ekilip yaklaşık %50 konflansa kadar kültüre edildi. GINS4 aşırı ekspresyonu, GINS4 aşırı ekspresyon plazmidi (GINS4-OE) (Genechem, Çin) ile transfeksiyon ile sağlandı; buna karşılık gelen boş vektör negatif kontrol (Ctrl-OE) olarak kullanıldı. Hücreler üreticinin talimatlarına göre Lipofectamine 3000 (Invitrogen, USA) ile transfekte edildi. Transaksiyonu yapılmayan hücreler boş grup olarak kullanıldı. Transeksiyondan 48 saatin ardından GINS4 aşırı ekspresyon verimliliği Western blot ile değerlendirildi. Takiben hücre canlılığı, ROS ve MDA seviyeleri değerlendirildi.
2.5 Ferrostatin-1 tedavisi
GINS4 knockdown ile oluşan hücre ölümünün ferroptosis tarafından aracılık edildiğinin doğrulanması için ferroptosis inhibitörü Ferr-1 (MedChemExpress, USA) kullanıldı. Özetle, TPC-1 ve IHH4 hücreleri GINS4-KD veya Ctrl-KD ile transfekte edildi, ardından sırasıyla 24 saat boyunca 1 μM Ferr-1 ile tedavi edildi.
2.6 Protein-protein etkileşim ağı analizi
GINS4 ile ferroptosis ile ilişkili belirteçler arasındaki potansiyel ilişkiyi araştırmak için, önce STRING veritabanı ( 16 ) kullanılarak PPI ağ analizi gerçekleştirildi. Ferroptosis ile ilişkili belirteç setleri, “ferroptosis” arama terimi temel alınarak GeneCards veritabanı ( 17 ) aracılığıyla oluşturuldu. Protein kodlayan genler, ilgililik skorlarına göre sıralandı ve PPI ağ analiz için en yüksek ilgililik skoruna sahip ilk 20 gen seçildi. GINS4 ve seçilen ferroptosis ile ilişkili genler daha sonra PPI ağı oluşturmak için STRING’e gönderildi ve minimum etkileşim skoru 0.400 (orta güven) olarak ayarlandı. Elde edilen ağ, GINS4 ile ferroptosis ile ilişkili proteinler arasındaki potansiyel etkileşimleri incelemek için görselleştirildi. Ardından, yukarıda belirtildiği gibi GINS4 knockdown deneyleri yapıldı ve p53, SLC7A11 ve GPX4 protein seviyeleri western blot ile tespit edildi.
2.7 Pifithrin-α tedavisi
GINS4 aracılığıyla ferroptosis mekanizmasında p53/SLC7A11/GPX4 yolunun rolü, p53 inhibitörü PFT-α (MedChemExpress, ABD) kullanılarak değerlendirildi. Kısa süreli olarak, TPC-1 ve IHH4 hücreleri önce GINS4-KD veya Ctrl-KD ile transfekte edildi, ardından sırasıyla 24 saat boyunca 20 μM PFT-α ile muamele edildi.
2.8 Western blot deneyi
TPC-1 ve IHH4 hücreleri protein izole etmek için RIPA Lizis Tamponu (Servicebio, Çin) ile muamele edildi ve eşit miktarlarda protein %10 Tris SwePAGE Jel (Servicebio, Çin) üzerinden ayrıldı. Proteinler PVDF membranlara aktarıldı ve Fast Blocking Buffer (Servicebio, Çin) ile bloklandı. Membranlar 4 °C’de gece boyu GINS4, p53, SLC7A11, GPX4 veya GAPDH’ye karşı birincil antikorlarla muamele edildi. İkincil antikorla inkübasyonun ardından membranlar yıkandı ve ECL Kiti (Meilunbio, Çin) kullanılarak geliştirildi. Antikorlar Proteintech (Çin) tarafından satın alındı ve önerilen seyreltmelerde kullanıldı. Sinyal tespiti için kemoilüminesans sinyalleri X-ray filmi (Fujifilm, Japonya) ile kaydedildi. Ayrıca, antikor stripping işlemi antikor stripping tamponu (Servicebio, Çin) kullanılarak gerçekleştirildi ve ardından ek birincil antikorlarla yeniden probing yapıldı. Protein bantları ImageJ (NIH, ABD) üzerinden kantitatif olarak değerlendirildi.
2.9 ROS boyama
ROS seviyeleri DCFH-DA Floresan Probe Kiti (Beyotime, Çin) kullanılarak ölçüldü. Kısa özetle, TPC-1 ve IHH4 hücreleri yıkandı ve 30 min boyunca 10 μM DCFH-DA ile muamele edildi. Bunun ardından hücreler serum içermeyen ortam ile üç kez yıkandı. ROS floresansı floresan mikroskobu (Motic, Çin) kullanılarak tespit edildi ve ortalık floresan yoğunluğu ImageJ ile değerlendirildi.
2.10 MDA tespiti
MDA seviyeleri MDA Assay Kiti (Servicebio, Çin) kullanılarak ölçüldü. TPC-1 ve IHH4 hücreleri hasat edilip lize edildi, ardından supernatant elde etmek için santrifüj edildi. Hücre lizatları MDA tespit tamponu ile karıştırıldı ve 95 °C’de 40 min inkübasyon yapıldı. Santrifüjenin ardından, supernatantın 200 μL’si 96 kuyucuklu plağa eklendi ve optik yoğunluk 532 nm’de (OD532) mikroplaka okuyucu (Huadong-Electronics, Çin) kullanılarak belirlendi.
2.11 MMP testi
MMP, JC-1 floresan probe ile değerlendirildi (Beyotime, Çin). Kısa özetle, TPC-1 ve IHH4 hücreleri yıkandı ve 30 min boyunca JC-1 çalışma çözeltisi ile muamele edildi. Hücreler ardından yıkandı ve floresans floresan mikroskobu altında görüntülendi. MMP, ImageJ kullanılarak agregat-monomer floresan yoğunluğu oranının hesaplanmasıyla değerlendirildi.
2.12 Fe2+ tespiti
Hücre içi Fe2+ düzeyi, Bir İyon Assay Kiti (Beyotime, Çin) kullanılarak tespit edildi. Kısa süre sonra, TPC-1 ve IHH4 hücreleri yıkandı ve 30 dakika boyunca 10 μL demir probu ile inkübe edildi. Ardından, 593 nm’de optik yoğunluk (OD593) mikroplate okuyucu ile belirlendi.
2.13 Hücre canlılık testi
Hücre canlılığı, Cell Counting Kit-8 (CCK-8; Beyotime, Çin) testi kullanılarak değerlendirildi. Kısa sonra, hücreler 96 kuyucuklu plakalara ekildi ve 24 saat kültür edildi. Her kuyucuğa CCK-8 reaktörü eklendi ve plakalar 37 °C’de 2 saat inkübe edildi. Absorbans 450 nm’de ölçüldü. Hücre canlılığı hesaplandı ve ilgili kontrol grubuna göre yüzde olarak ifade edildi.
2.14 Kromatin immünopresipisitasyon-qPCR
p53’ün SLC7A11 promotörüne bağlanması, ChIP-qPCR ile incelendi. Kısa sonra, hücreler formaldehit ile çapraz bağlandı, lize edildi ve kromatin parçaları elde etmek için sonikleştirildi. Parçalanmış kromatin, anti-p53 anticisimi ile immünopresipisiton edildi ve normal IgG negatif kontrol olarak kullanıldı. Girdi DNA’sı referans olarak korundu. Ters çapraz bağlanma ve DNA saflaştırma sonrasında, qPCR, SLC7A11 promotör bölgesini hedef alan primerler (İleri, AGGCTTCTCATGTGGCTGAT; Geri, TGCATCGTGCTCTCAATTCT) kullanılarak qPCR Master Mix kiti (Servicebio, Çin) ile gerçekleştirildi. SLC7A11 promotörünün zenginleşme katı, girdi ve IgG kontrollerine göre analiz edildi.
2.15 İstatistiksel analiz
Veriler, ortalama ± standart sapma (SD) olarak sunuldu. İstatistiksel analiz, GraphPad Prism yazılımı (sürüm 10, Dotmatics, USA) ile yapıldı. Çoklu gruplar arasındaki karşılaştırmalar, tek yönlü varyans analizi ardından Tukey testi kullanılarak gerçekleştirildi. İstatistiksel anlamlılık, P < 0.05 olarak belirlendi.
3 Bulgular
3.1 Tiroid kanserinde GINS4 ifadesi ve prognoz değeri
GEPIA veritabanı kullanılarak analiz edilen TCGA ve GTEx proje verilerine göre, GINS4 ifadesi normal tiroid dokularına kıyasla tiroid kanseri dokularında anlamlı derecede yüksekti (P < 0.001) (Ek Şekil 1A). Kaplan-Meier analizleri, yüksek GINS4 ifadesi olan hastalarda daha kötü overall sağlıkmada eğilimi gösterdi; ancak bu fark istatistiksel olarak anlamlı değildi (P = 0.63) (Ek Şekil 1B). Buna karşılık, yüksek GINS4 ifadesi kötü relapsız sağlıkmada ile anlamlı derecede ilişkiliydi (P = 0.04) (Ek Şekil 1C).
TPC-1 ve IHH4 hücreleri, tiroid kanseri çalışmalarında yaygın olarak kullanılan yerleşik insan papiller tiroid karsinom hücre hatları oldukları için hücre deneyleri için seçildi. Ayrıca, Western blot analizi, GINS4 protein ifadesinin hem IHH4 hem de TPC-1 hücrelerinde normal tiroid Nthy-ori 3–1 hücreleriyle karşılaştırıldığında yükseldiğini gösterdi (her iki durumda da P < 0.01) (Ek Şekil 1D); bu da bu hücre hatlarının sonraki GINS4 knockdown deneyleri için uygunluğunu destekledi.
3.2 GINS4 knockdown, tiroid kanseri hücre hatlarında ferroptozu tetikledi
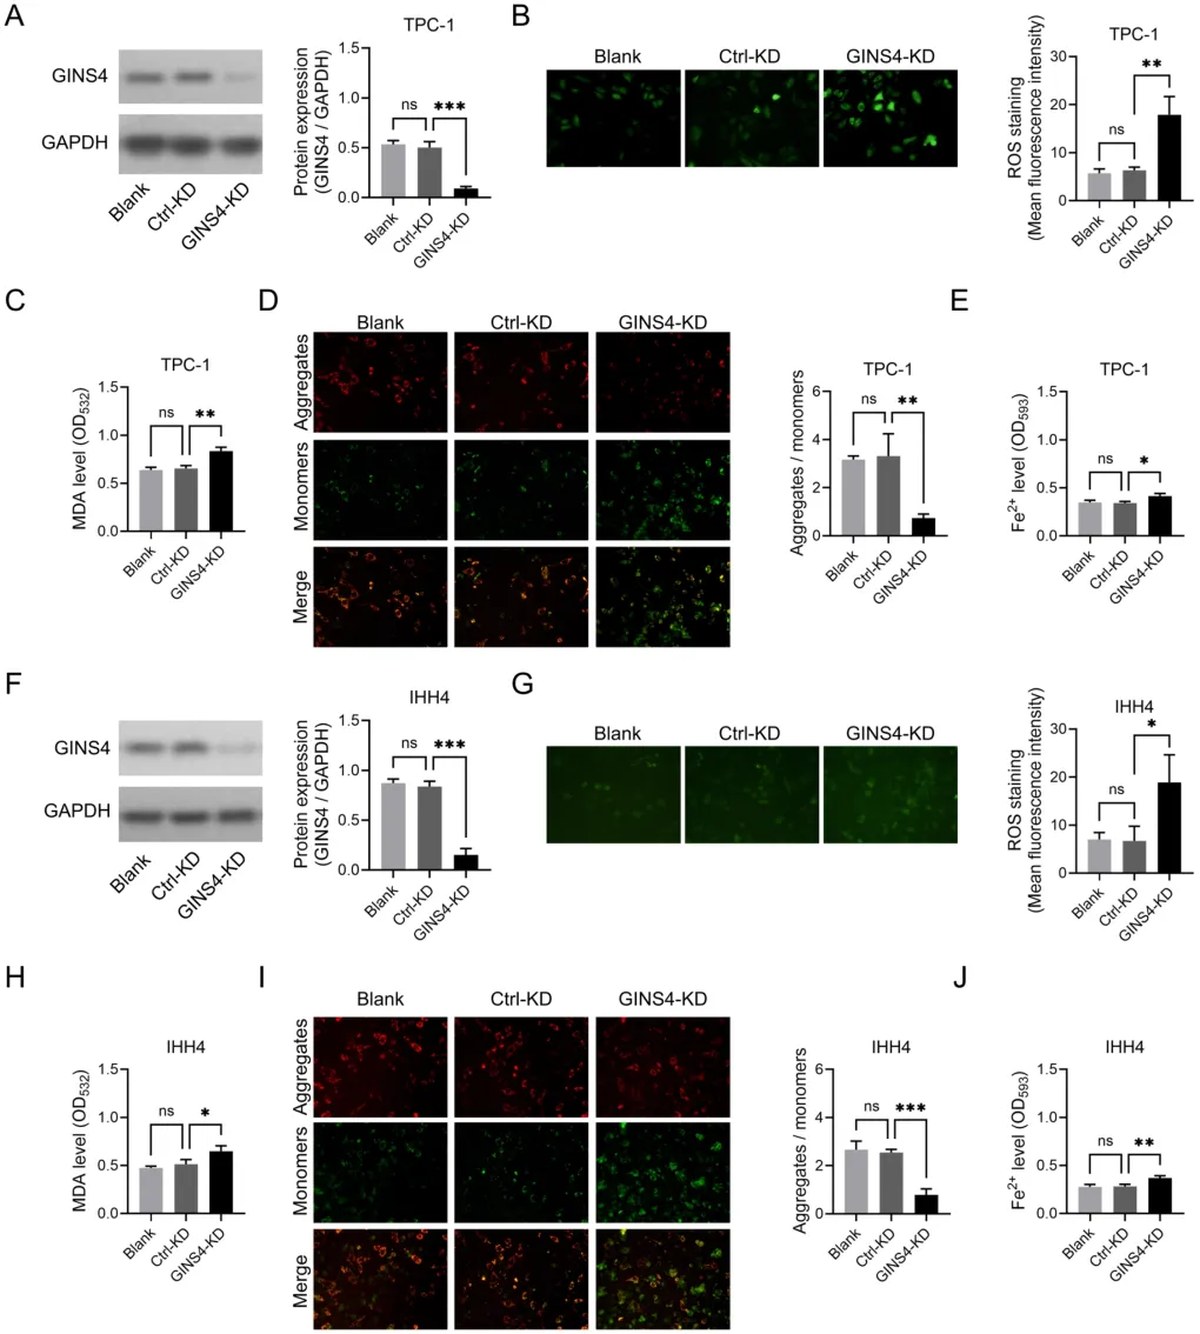
Western blot testi, Ctrl-KD grubuna kıyasla GINS4-KD grubunda hem TPC-1 hem de IHH4 hücrelerinde GINS4 protein seviyelerinin azaldığını gösterdi (her iki durumda da P < 0.001); bu da GINS4 knockdown’ın başarılı olduğunu gösteriyor. Fonksiyonel analizler, hem TPC-1 hem de IHH4 hücrelerinde ROS (her iki durumda da P < 0.05), MDA (her iki durumda da P < 0.05) ve Fe2+ seviyelerinin (her iki durumda da P < 0.05) arttığını, MMP’nin ise (her iki durumda da P < 0.01) GINS4-KD grubunda Ctrl-KD grubuna kıyasla azaldığını gösterdi (Şekiller 1A–J).
Şekil 1
3.3 GINS4 aşırı ifade, tiroid kanseri hücre hatlarında hücre canlılığını artırdı ve ferroptozu hafifletti
Western blot analizi, TPC-1 ve IHH4 hücrelerinde GINS4 protein ifadesinin Ctrl-OE grubuna göre GINS4-OE grubunda her iki hücrede de arttığını gösterdi (her ikisinde de P < 0,001). Ayrıca, her iki hücre hattında da GINS4-OE grubunda hücre canlılığı Ctrl-OE grubuna göre artmıştı (her ikisinde de P < 0,05). Buna ek olarak, TPC-1 ve IHH4 hücrelerinde GINS4-OE grubunda ROS ve MDA düzeyleri Ctrl-OE grubuna göre azalmıştı (hepsinde P < 0,05) (Ek Şekiller 2A–H).
3.4 Ferr-1, tiroid kanser hücre hatlarında GINS4 knockdown’ın ferroptosis üzerindeki etkilerini tersine çevirdi
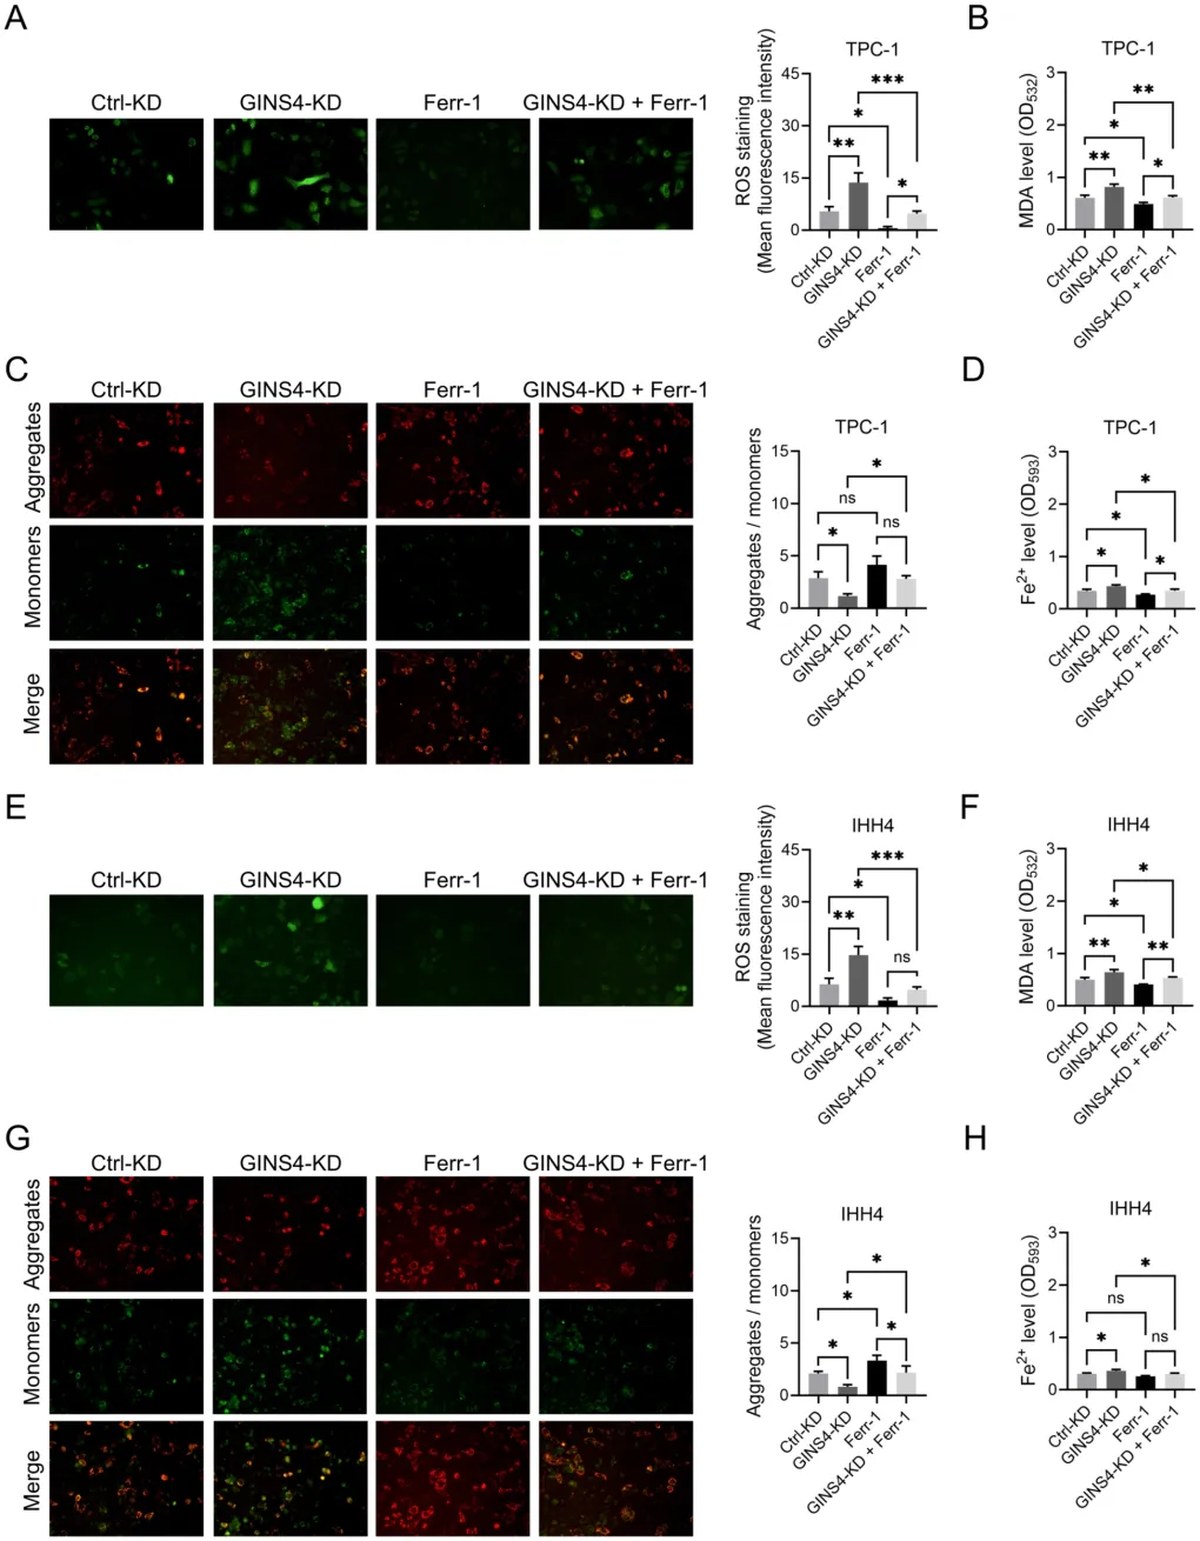
Ctrl-KD grubuna karşı, Ferr-1 grubunda ferroptosis zayıflamıştı; bu, her iki hücrede de azalmış ROS (her ikisinde de P < 0,05) ve MDA (her ikisinde de P < 0,05) ile kanıtlandı. Ancak Ferr-1’in MMP ve Fe2+ düzeyleri üzerindeki etkileri hücre hattına özgü farklılıklar gösterdi; MMP’de artış (i
< 0,05) yalnızca IHH4 hücrelerinde, Fe2+ düzeylerinde azalma ise yalnızca TPC-1 hücrelerinde gözlemlendi. GINS4-KD grubuna karşı, TPC-1 ve IHH4 hücrelerinde GINS4-KD+Ferr-1 grubunda ROS (her ikisinde de P < 0,001), MDA (her ikisinde de P < 0,05) ve Fe2+ düzeyleri (her ikisinde de P < 0,05) azalmış, MMP (her ikisinde de P < 0,05) artmıştı (Şekiller 2A–H).
Şekil 2
3.5 GINS4 knockdown, tiroid kanser hücre hatlarında p53, SLC7A11 ve GPX4’ü düzenledi
PPI ağ analizi, p53’ü GINS4 ile ilişkili ferroptosis düzenleyici ağında bir hub molekülü, SLC7A11 ve GPX4’ü ise ana ferroptosis ile ilişkili moleküller olarak belirledi (Şekil 3A). Ardından, tiroid kanser hücre hatlarında GINS4 knockdown’ın p53, SLC7A11 ve GPX4 üzerindeki etkileri daha ileri düzeyde değerlendirildi. Her iki hücrede de p53, Ctrl-KD grubuna karşı GINS4-KD grubunda artmıştı (her ikisinde de P < 0,01), buna karşılık SLC7A11 (her ikisinde de P < 0,05) ve GPX4 (her ikisinde de P < 0,05) azalmıştı (Şekiller 3B, C).
Şekil 3
3.6 PFT-α, tiroid kanser hücre hatlarında GINS4 knockdown’ın p53/SLC7A11/GPX4 yolundaki etkilerini tersine çevirdi
Ctrl-KD grubuyla karşılaştırıldığında, hem TPC-1 hem de IHH4 hücrelerinde PFT-α grubunda p53 azalmış (her iki durumda da P < 0,05), SLC7A11 (her iki durumda da P < 0,05) ve GPX4 (her iki durumda da P < 0,05) ise yükselmiştir. Dikkat çeken nokta, GINS4-KD grubuyla karşılaştırıldığında GINS4-KD+PFT-α grubunda azalmış p53 (her iki durumda da P < 0,01) ve yükselmiş SLC7A11 (her iki durumda da P < 0,05) ve GPX4 (her iki durumda da P < 0,05) ile PFT-α’nın GINS4 knockdown’ın p53/SLC7A11/GPX4 yolundaki etkilerini tersine çevirebildiği görülmüştür (Şekiller 4A, B). Buna ek olarak, ChIP-qPCR analizi, hem IHH4 (P < 0,01) hem de TPC-1 hücrelerinde anti-p53 immünopresipitatlarında, IgG kontrollerine göre SLC7A11 promotorunun anlamlı derecede daha büyük zenginleşmesini göstermiş ve bu da p53’ün SLC7A11 promotoruna bağlandığını desteklemektedir (Ekleme Şekil 3).
Şekil 4
3.7 PFT-α, tiroid kanser hücre hatlarında GINS4 knockdown’ın ferroptozdaki etkilerini tersine çevirdi
GINS4 ile ilişkili ferroptozda p53/SLC7A11/GPX4 yolunun rolü daha ileri düzeyde değerlendirilmiştir. TPC-1 hücrelerinde, PFT-α grubunda Ctrl-KD grubuna göre ROS (P < 0,05) ve MDA (P < 0,05) azalmış, MMP (P < 0,05) ise yükselmiştir; ancak IHH4 hücrelerinde, PFT-α grubunda yalnızca ROS (P < 0,01) Ctrl-KD grubuna göre azalmış, diğer ferroptoz belirteçleri ise istatistiksel anlamlılığa ulaşamadan yalnızca bir eğilim göstermiştir. GINS4-KD grubuyla karşılaştırıldığında, hem TPC-1 hem de IHH4 hücrelerinde GINS4-KD+PFT-α grubunda ferroptoz azalmıştır; bu, azalmış ROS (her iki durumda da P < 0,001), MDA (her iki durumda da P < 0,05) ve Fe2+ seviyeleri (her iki durumda da P < 0,05) ve yükselmiş MMP (her iki durumda da P < 0,05) ile kanıtlanmıştır (Şekiller 5A–H).
Şekil 5
3.8 Ferr-1 ve PFT-α, tiroid kanser hücre hatlarında GINS4 knockdown’ın hücre canlılığındaki etkilerini tersine çevirdi
GINS4-KD grubunda hücre canlılığı, hem TPC-1 hem de IHH4 hücrelerinde Ctrl-KD grubuna göre azalmış (her iki grupta da P < 0,05) (Eklek Şekil 4A). IHH4 hücrelerinde hücre canlılığı Ferr-1 grubunda Ctrl-KD grubuna göre artmış (P < 0,05); ayrıca GINS4-KD+Ferr-1 grubunun hücre canlılığı, her iki tiroid kanseri hücre hattında da GINS4-KD grubundan yüksek bulunmuş (her iki grupta da P < 0,01) (Eklek Şekil 4B). Buna karşılık, hücre canlılığı her iki tiroid kanseri hücre hattında da PFT-α grubu ile Ctrl-KD grubu arasında farklılık göstermemiştir (her iki grupta da P>0,05). Bununla birlikte, hücre canlılığı her iki TPC-1 ve IHH4 hücreinde de GINS4-KD+PFT-α grubunda GINS4-KD grubuna göre yükselmiştir (her iki grupta da P < 0,05) (Eklek Şekil 4C).
4 Tartışma
GINS4, çeşitli insan malignansilerde düzensiz düzenlenmekte ve tümör gelişimine ve ilerlemesine katkıda bulunmaktadır ( 12 , 18 – 20 ). Pan-kanser analizleri, GINS4’ün çok sayıda kanserde yukarı düzenlendiğini ve aşırı ifadesinin kötü sağkalım ve artmış metastas gibi olumsuz klinik sonuçlarla ilişkili olduğunu ortaya koymuştur ( 19 ). Önceki fonksiyonel çalışmalar, GINS4’ün tümör hücresi proliferasyonunu, hücre döngüsü ilerlemesini ve metastatik kapasiteyi farklı moleküler mekanizmalar aracılığıyla teşvik ettiğini göstererek GINS4’ün kanserdeki onkojenik rolünü daha da aydınlatmıştır ( 12 , 20 – 22 ). GINS4’ün kanser ilerlemesindeki katılımını destekleyen kapsamlı kanıtlara rağmen, diğer kanserle ilişkili süreçlerdeki olası rolü yeterince incelenmemiştir. Düzenlenmiş hücre ölümünün yeni tanınmış bir formu olan ferroptozis, tümör başlangıcı, ilerlemesi ve tedavi yanıtındaki önemli rolü nedeniyle artan ilgi çekmektedir ( 23 , 24 ). Bu çalışmada, GINS4 knockdown’ın tiroid kanseri hücre hatlarında ROS, MDA ve Fe2+ seviyelerini artırdığını, MMP’yi ise azalttığını bulduk; bu da GINS4 knockdown’ın ferroptozisi teşvik ettiğini göstermektedir. Bulgularımız, GINS4’ün LUAD ve HCC’de ferroptozisin bir negatif düzenleyicisi olduğunu gösteren önceki çalışmalarla uyumluydu ( 14 , 15 ). Sonrasında, GINS4 knockdown tarafından indüklenen hücresel değişikliklerin ferroptozise bağlı olup olmadığını doğrulamak için ferroptozis inhibitörü Ferr-1 kullanıldı. Ferr-1, tiroid kanseri hücre hatlarında GINS4 knockdown tarafından indüklenen ferroptozisi tersine çevirdi. Bu bulgulular, GINS4 knockdown tarafından indüklenen etkilerin ferroptozisle yakından ilişkili olduğunu daha da desteklemektedir.
Moleküler mekanizmaların, GINS4 tarafından aracılık edilen ferroptozun tiroid kanserindeki temellerini daha iyi açıklamak için PPI ağ analizi yapıldı. GINS4 ile ilişkili ağda potansiyel bir hub molekül olarak p53 tanımlandı; SLC7A11 ve GPX4 dahil olmak üzere ferroptozla ilgili birden fazla proteinle işlevsel bağlantılar gösterdi. p53’ün, hücresel redoks homeostazını ve lipid peroksidasyonunu düzenleyerek tiroid kanserinde ferroptozun kritik bir düzenleyicisi olduğu bilinmektedir ( 25 , 26 ). p53’ün aşağıında, SLC7A11/GPX4 ekseni, tümör hücrelerini ferroptozdan koruyan başlıca antioksidan sistemlerden biri olarak kabul edilmektedir ( 27 – 30 ). Önceki çalışmalar, aktive olmuş p53’ün SLC7A11 ifadesini baskılayarak GPX4 bağımlı lipid peroksit detoksifikasyonunu bozduğu ve buna bağlı olarak ferroptoz oluştuğunu göstermiştir ( 27 – 30 ). Önemlisi, Chen ve arkadaşları GINS4’ün, LUAD’da p53’ün kararsızlaşmasını teşvik ederek ferroptozu baskıladığını bildirmiş; bu da GINS4 ile p53 sinyallemesi arasında işlevsel bir bağlantı olduğunu öne sürmüştür ( 15 ). Bu nedenle, GINS4’ün tiroid kanserinde ferroptozu p53/SLC7A11/GPX4 yolu aracılığıyla düzenleyebileceğini varsaydık. Beklendiği gibi, GINS4 knockdown’ı tiroid kanser hücrelerinde p53 ifadesini artırırken SLC7A11 ve GPX4 ifadesini azalttı. Ayrıca, p53’ün PFT-α ile farmakolojik inhibisyonu, tiroid kanser hücre hatlarında GINS4 knockdown’ın p53, SLC7A11 ve GPX4 üzerindeki etkilerini geri döndürdü; bu da p53/SLC7A11/GPX4 yolunun tiroid kanser hücrelerinde GINS4’ün aşağıında işlev görebileceğini göstermektedir.
p53/SLC7A11/GPX4 yol bağı, meme kanseri ve kalın bağırsak kanseri gibi çeşitli kanser türlerinde ferroptozda yakından rol alır ( 31 , 32 ). Bu çalışmada, p53’ün PFT-α ile farmakolojik inhibisyonunun tiroid kanseri hücre hatlarında ferroptozu azalttığını gözlemledik. Bununla birlikte, hücre hattına özgü farklar gözlemlendi. Spesifik olarak, PFT-α’nın ferroptoz belirteçleri üzerindeki inhibitory etkiler, IHH4 hücrelerine kıyasla TPC-1 hücrelerinde daha belirgindi. Bu tutarsızlık, bu iki tiroid kanseri hücre hattı arasındaki genetik arka plan, bazal p53 aktivitesi veya ferroptozla ilgili düzenleyicilerin ekspresyon profillerindeki farklılıklar gibi içsel biyolojik farklılıklara atfedilebilir. Takiben, p53/SLC7A11/GPX4 yol bağının GINS4 ile ilişkili ferroptozda yer alıp almadığını daha yakından incelemek amacıyla PFT-α, GINS4 knockdown ile birleştirildi. PFT-α’nın, hem tiroid kanseri hücre hatlarında azalmış ROS, MDA ve Fe2+ seviyeleri ile geri kazandılmış MMP ile kanıtlandığı gibi GINS4 knockdown tarafından indüklenen ferroptozu kurtardığını bulduk. Bu bulgular, GINS4 knockdown’ın tiroid kanserde p53/SLC7A11/GPX4 yol bağını düzenleyerek ferroptozu kolaylaştırdığını daha güçlü biçimde desteklemektedir. Önceki bir çalışma temel alınarak, GINS4’ün Snail kaynaklı p53 stabilizasyonunu düzenleyerek dolaylı olarak tiroid kanserde SLC7A11/GPX4 ekspresyonunu ve ferroptozu etkileyebileceği öngörüldü ( 15 ). Bununla birlikte, bu öngörü tiroid kanseri modellerinde doğrulanmalıdır.
İlginçtir ki, Ferr-1’in TPC-1 ve IHH4 hücrelerinde hücre canlılığı, MMP ve Fe2+ seviyeleri üzerindeki hücre hattına özgü etkileri gözlemledik. Bu farklılıklar, ferroptoz inhibisyonuna hücre hassasiyetindeki farklılıkları veya ardılı hücre bağlamındaki farklılıkları yansıtıyor olabilir. Bununla birlikte, bu hipotezlerin doğrulanması için daha fazla mekanistik çalışmaya ihtiyaç vardır.
Birkaç kısıtlamanın kabul edilmesi gerekir. (1) GEPIA veritabanına dayanan biyoenformatik analiz, tiroid kanseri dokusunda GINS4 ifadesinde artış göstermiş olsa da, immunohistokimyasal doğrulama için klinik doku örnekleri mevcut değildi. GINS4 ifadesinin tiroid kanseri dokusunda doğrulanması için klinik örnekler içeren çalışmalar gereklidir. (2) GINS4 knockdown’ın tiroid kanser hücrelerinin hayatta kalmasını azalttığını bulduk. Bununla birlikte, hücre proliferasyonu, göçü ve istilası dahil olmak üzere GINS4’ün diğer malign fenotipler üzerindeki etkileri araştırılmayı beklemektedir. GINS4’ün tiroid kanseri ilerlemesindeki rolünü aydınlatmak için çalışmalar gerektir.
5 Sonuç
Sonuç olarak, GINS4 knockdown, tiroid kanserde p53/SLC7A11/GPX4 yolu aracılığıyla ferroptozu teşvik eder. Klinik olarak, GINS4’ü hedeflemek, tiroid kanserde ferroptozu artırmak için potansiyel bir terapötik strateji temsil edebilir. Bununla birlikte, bu terapötik potansiyeli doğrulamak için in vivo modelleri ve klinik örnekleri kullanan çalışmalar gerektir.
İfadeler
Veri erişilebilirlik ifadesi
Çalışmada sunulan özgün katkılar makale/Ekleme Materyali içinde yer almaktadır. Ek sorular ilgili yazar ile iletişime geçerek yöneltilebilir.
Yazar katkıları
ZW: Kavramsal tasarım, Metodoloji, Gözetim, Yazım – özgün taslak, Yazım – inceleme & düzenleme. SW: Kavramsal tasarım, Resmi analiz, Proje yönetimi, Yazım – özgün taslak, Yazım – inceleme & düzenleme. PF: Kavramsal tasarım, Formal analiz, Proje yönetimi, Yazım – özgün taslak, Yazım – inceleme & düzenleme. FY: Veri düzenlemesi, Araştırma, Kaynaklar, Yazım – özgün taslak, Yazım – inceleme & düzenleme. QZ: Veri düzenlemesi, Araştırma, Kaynaklar, Yazım – özgün taslak, Yazım – inceleme & düzenleme.
Finansman
Makale yazarları, bu çalışma ve/veya yayının finansal destek aldığını beyan etmiştir. Bu çalışma, Hubei Eyaleti Doğal Bilimler Vakfı (No. 2022CFB772) ve Yapay Zeka Destekli meme kanserinde neoadjuvan kemoterapinin patolojik tam yanıt oranı için Erken Tahmin Modeli (No. 2026AFD085) tarafından desteklenmiştir.
Çıkar çatışması
Makale yazarları, bu çalışmanın, olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir ticari veya finansal ilişki olmadan yürütüldüğünü beyan etmiştir.
Üretken yapay zeka bildirimi
Makale yazarları, bu metnin hazırlanmasında üretken yapay zeka kullanılmadığını beyan etmiştir.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text), Frontiers tarafından yapay zeka desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların gözünden geçirdiği doğruluk için makul çabalar gösterilmiştir. Herhangi bir sorunu tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncı notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve mutlaka bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini temsil etmez. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ekleme materiali
Bu makalenin Ekleme Materiali çevrimiçi olarak şu adresten bulunabilir: https://www.frontiersin.org/articles/10.3389/fonc.2026.1952896/full#supplementary-material
Ekleme Şekil 1
Tiroid kanserinde GINS4’ün anormal ifadesi ve prognoz değeri. TCGA ve GTEx verilerine dayalı tiroid kanseri ile normal tiroid dokuları arasında GINS4 ifadesinin karşılaştırılması (A); yüksek ve düşük GINS4 ifadesine sahip hastalar arasında OS (B) ve DFS (C)‘nin karşılaştırılması; normal tiroid Nthy-ori 3–1 hücreleri ile IHH4 ve TPC-1 hücreleri arasında GINS4 protein ifadesinin karşılaştırılması (D).
Ekleme Şekil 2
GINS4’ün aşırı ifadesinin tiroid kanseri hücre hatlarında hücre canlılığı ve ferroptoz üzerindeki etkileri. TPC-1 hücrelerinde boş, Ctrl-OE ve GINS4-OE grupları arasında GINS4 (A), hücre canlılığı (B), ROS (C) ve MDA (D) karşılaştırması. IHH4 hücrelerinde boş, Ctrl-OE ve GINS4-OE grupları arasında GINS4 (E), hücre canlılığı (F), ROS (G) ve MDA (H) karşılaştırması.
Ek Figure 3
p53’ün tiroid kanseri hücre hatlarında SLC7A11 promotoruna bağlanması.
Ek Figure 4
GINS4 knockdown’ın, Ferr-1’in ve PFT-α’nın tiroid kanseri hücre hatlarında hücre canlılığı üzerindeki etkileri. IHH4 ve TPC-1 hücrelerinde boş, Ctrl-KD ve GINS4-KD grupları arasında hücre canlılığı karşılaştırması (A); Ctrl-KD, GINS4-KD, Ferr-1 ve GINS4-KD+Ferr-1 grupları arasında hücre canlılığı karşılaştırması (B); Ctrl-KD, GINS4-KD, PFT-α ve GINS4-KD+PFT-α grupları arasında hücre canlılığı karşılaştırması (C).
-
Sung H, Filho AM, Laversanne M, Ferlay J, Siegel RL, Soerjomataram I ve ark.
Global kanser istatistikleri 2024: 186 ülkede 34 kanser için küresel insidans ve mortalite GLOBOCAN tahminleri. CA: A Cancer J For Clin. (2026) 76:e70090. doi: 10.3322/caac.70090- Pubmed Abstract
- CrossRef
- Google Scholar
-
Boucai L, Zafereo M, Cabanillas ME.
Tiroid kanseri: Bir derleme. Jama. (2024) 331:425–35. doi: 10.1001/jama.2023.26348- Pubmed Abstract
- CrossRef
- Google Scholar
-
Tang L, Angell T E.
Tiroid kanseri. Semin Perinatol. (2025) 49:152042. doi: 10.1016/j.semperi.2025.152042- Pubmed Abstract
- CrossRef
- Google Scholar
-
Kotwal A, Fingeret A, Knape A, Patel A, Bradford Bell E, Goldner W.
Tiroid kanseri sağkalımı: Zorluklar ve fırsatlar. Endocrine Pract. (2024) 30:1097–102. doi: 10.1016/j.eprac.2024.08.003- Pubmed Abstract
- CrossRef
- Google Scholar
-
LiZWangNLiXXieYDouZXinHet al.
Tiroid kanserinden moleküler içgörüden terapilere (derleme). Oncol Lett. (2025) 30:520. doi: 10.3892/ol.2025.15266- Pubmed Abstract
- CrossRef
- Google Scholar
-
MouYWangJWuJHeDZhangCDuanCet al.
Ferroptoz, hücre ölümünün yeni bir biçimi: Kanserdeki fırsatlar ve zorluklar. J Hematol Oncol. (2019) 12:34. doi: 10.1186/s13045-019-0720-y- Pubmed Abstract
- CrossRef
- Google Scholar
-
DixonSJOlzmannJA.
Ferroptozun hücre biyolojisi. Nat Rev Mol Cell Biol. (2024) 25:424–42. doi: 10.1038/s41580-024-00703-5- Pubmed Abstract
- CrossRef
- Google Scholar
-
UbellackerJMDixonSJ.
Kanserde ferroptoz terapilerinin beklentileri. Nat Cancer. (2025) 6:1326–36. doi: 10.1038/s43018-025-01037-7- Pubmed Abstract
- CrossRef
- Google Scholar
-
TianWSuXHuCChenDLiP.
Tiroid kanserinde ferroptoz: Mekanizmalar, güncel durum ve tedavi. Front Oncol. (2025) 15:1495617. doi: 10.3389/fonc.2025.1495617- Pubmed Abstract
- CrossRef
- Google Scholar
-
LiuXWangLXiXZhouTSunZZhangB.
Ferroptozu hedeflemek: Tiroid kanser tedavisine yönelik yenilik bir içgörü. Front Endocrinol. (2025) 16:1527693. doi: 10.3389/fendo.2025.1527693- Pubmed Abstract
- CrossRef
- Google Scholar
-
ChenWLaiX.
Tiroid kanserinde ferroptozu açıklayan mekanistik içgörüler ve terapötik çıkarımları. Apoptosis: Int J Programmed Cell Death. (2026) 31:141. doi: 10.1007/s10495-026-02322-1- Pubmed Abstract
- CrossRef
- Google Scholar
-
ZhuZYuZRongZLuoZZhangJQiuZet al.
Yenilik GINS4 ekseni, Rac1 ve CDC42’yi aktive ederek mide kanserinin büyümesini ve ilerlemesini destekler. Theranostics. (2019) 9:8294–311. doi: 10.7150/thno.36256- Pubmed Abstract
- CrossRef
- Google Scholar
-
Yang, Liu, Chen, Jiang, Shi, Mao ve ark. LSH, küçük hücreli olmayan akciğer kanserinde tümör oluşumunu teşvik eden GINS4 transkripti ile etkileşime girip onu stabilize eder. J Exp Clin Cancer Res: CR. (2019) 38:280. doi: 10.1186/s13046-019-1276-y
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Yao, Yang, Yuan, Wang, Liao, Song ve ark. GINS4 baskılanması, POLE2 aracılığıyla hepatosellüler kanser hücrelerinin proliferasyonunu, hücre döngüsünü ve ferroptozu düzenler. Cell Signalling. (2025) 131:111742. doi: 10.1016/j.cellsig.2025.111742
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Chen, Cai, Yang, Wang, Ling, Li ve ark. GINS4, Snail aracılığıyla p53 asetilasyonunu antagonistikleştirerek ferroptozu baskılar. PNAS. (2023) 120:e2219585120. doi: 10.1073/pnas.2219585120
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Szklarczyk, Kirsch, Koutrouli, Nastou, Mehryary, Hachilif ve ark. STRING veritabanı 2023: İlgili dizilenmiş tüm genomlar için protein-protein ilişki ağları ve fonksiyonel zenginleştirme analizleri. Nucleic Acids Res. (2023) 51:D638–d646. doi: 10.1093/nar/gkac1000
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Stelzer, Rosen, Plaschkes, Zimmerman, Wik, Fishilevich ve ark. GeneCards Suite: Gen veri madenciliğinden hastalık genomu dizilişi analizlerine. Curr Protoc Bioinf. (2016) 54:1.30.31–1.30.33. doi: 10.1002/cpbi.5
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Liu, Liu, Wang, Lian, Han, Cheng ve ark. GINS4’ün aşırı ifadesi, glioma hastalarında kötü prognoz ve hayatta kalma ile ilişkilidir. Mol Med (Cambridge Mass). (2021) 27:117. doi: 10.1186/s10020-021-00378-0
- Pubmed Abstract
- CrossRef
- Google Scholar
-
UsmanMOklaMKAsifHMAbdElgayedGMucceeFGhazanfarSet al.
GINS kompleks alt birimi 4’ün çoklu insan kanserlerinde potansiyel bir biyomarker olarak rolini belirlemek için bir pan-kanser analizi. Am J Cancer Res. (2022) 12:986–1008.- Google Scholar
-
RongZLuoZZhangJLiTZhuZYuZet al.
GINS kompleks alt birimi 4, bir prognoz biyomarkerıdır ve Krüppel benzeri faktör 4 tarafından ters yönde düzenlenerek rektum kanserinin büyümesini teşvik eder. Cancer Sci. (2020) 111:1203–17. doi: 10.1111/cas.14341- Pubmed Abstract
- CrossRef
- Google Scholar
-
ZhouYYanJChenHZhouWYangJ.
MicroRNA-133a-3p, GINS4’ü hedefleyerek akciğer adenokarsinomunun gelişimini ve sisplatin direncini baskılar. Cells Tissues Organs. (2024) 213:55–66. doi: 10.1159/000527684- Pubmed Abstract
- CrossRef
- Google Scholar
-
TomiokaYSuetsuguTSekiNTanigawaKHagiharaYShinmuraMet al.
Tümör baskılayıcı miR-486-5p ve miR-486-3p hedef genlerinin moleküler patojenezisi: GINS4, akciğer adenokarsinomunda agresifliği teşvik eder. Cells. (2023) 12:1885. doi: 10.3390/cells12141885- Pubmed Abstract
- CrossRef
- Google Scholar
-
ZhouQMengYLiDYaoLLeJLiuYet al.
Kanserde ferroptozis: Moleküler mekanizmalardan terapötik stratejilere. Signal Transduct Targeted Ther. (2024) 9:55. doi: 10.1038/s41392-024-01769-5- Pubmed Abstract
- CrossRef
- Google Scholar
-
Veglia TrancheseRBattistaSCerchiaLFedeleM.
Kanserde ferroptozis: Epigenetik kontrol ve terapötik fırsatlar. Biomolecules. (2024) 14:1443. doi: 10.3390/biom14111443- Pubmed Abstract
- CrossRef
- Google Scholar
-
ZhangHMLiHNQiEYangYMaHMaJet al.
GGCT, RPS15A üzerinden p53’ü yukarı düzenleyerek PTC hücrelerinde ferroptozisi baskılar. Cancer Sci. (2025) 116:1592–603. doi: 10.1111/cas.70039- Pubmed Abstract
- CrossRef
- Google Scholar
-
Liang, Chen, Lei, Mo, Lan, Ke, Jet ve ark. APG-115, tiroid kanserde SLC7A11 aracılı ferroptozisi indükler ve PD-L1 ifadesini artırir. ACS Omega. (2025) 10:31099–107. doi: 10.1021/acsomega.5c04710
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Jiang, Kon, Li, Wang, Su, Hibshoosh ve ark. Ferroptozis, tümör baskılaması sırasında p53 aracılı bir etkinlik olarak ortaya çıkar. Nature. (2015) 520:57–62. doi: 10.1038/nature14344
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Ma, Zhu, Yao, Chen, Yao, Shen ve ark. Ginsenosid Rg3, p53/SLC7A11/GPX4 yolu aracılığı ile ferroptozisi indükleyerek melanom ilerlemesini baskılar. J Adv Res. (2026) 85:1189–205. doi: 10.1016/j.jare.2025.10.069
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Li, Fan, Pan, Li, Cao, Zhuo ve ark. Chaihu Guizhi Ganjiang dekoksyonu, p53/SLC7A11/GPX4 yolunu düzenleyerek asiner hücre ferroptozisini baskılayarak kronik pankreatiti hafifletir. J Ethnopharmacol. (2026) 358:121001. doi: 10.1016/j.jep.2025.121001
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Zhou, Liu, Shi, Qiu, Li, Shu ve ark. CLK2, colorektal kanserde ferroptozisi baskılamak için KEAP1/NRF2 ve p53 yollarını düzenler. Cancer Res. (2025) 85:4734–50. doi: 10.1158/0008-5472.Can-24-4949
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Lei, Zhang, Huang, Chen, Wu, ve ark. Gankyrin, üçlü negatif breast kanseri hücrelerinde p53/SLC7A11/GPX4 eksisi aracılığı ile ferroptozisi baskılar. Sci Rep. (2023) 13:21916. doi: 10.1038/s41598-023-49136-8
- Pubmed Abstract
- CrossRef
- Google Scholar
-
Wang, Yan, Ma, Chen, Liu ve ark. Andrographolid, SLC7A11/GPX4 sinyal yolunun p53 aracılı aşağı düzenlemesi yoluyla renal hücreli karsinomda ferroptozisi indükler. Phytomed: Int J Phytother Phytopharmacol. (2025) 148:157470. doi: 10.1016/j.phymed.2025.157470
- Pubmed Abstract
- CrossRef
- Google Scholar
Özet
Anahtar Kelimeler
ferroptosis, GINS4, p53/SLC7A11/GPX4 yolu, protein-protein etkileşim analizi, tiroid kanseri
Başvuru
Wang S, Fu P, Zhang Q, Yang F ve Wei Z (2026) GINS4 knockdown, tiroid kanserinde p53/SLC7A11/GPX4 yolu yoluyla ferroptozisi kolaylaştırır. Front. Oncol. 16:1952896. doi: 10.3389/fonc.2026.1952896
Müracaat Tarihi
30 Temmuz 2026
Düzeltilme
26 Ekim 2026
Kabul Tarihi
28 Ekim 2026
Yayın Tarihi
13 Kasım 2026
Cilt
16 – 2026
Xiangbing Meng, Iowa Üniversitesi, Amerika Birleşik Devletleri
Cunliang Deng, Güneybatı Tıp Üniversitesi Bağlı Hastanesi, Çin
Dengwang Chen, Zunyi Tıp Üniversitesi, Çin
© 2026 Wang, Fu, Zhang, Yang ve Wei.
Bu, Creative Commons Atıf Lisansı (CC BY) koşulları altında dağıtılan açık erişimli bir makaledir. Orijinal yazar(lar)ın ve telif hakkı sahib(lar)ının atıf yapılması ve kabul edilen akademik uygulamalara uygun olarak bu dergideki orijinal yayının gösterilmesi şartıyla, diğer forumlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan hiçbir kullanım, dağıtım veya çoğaltma izinlidir.
*İletişim: Zhanjie Wei, weizhanjiewh@163.com
†Bu çalışmaya eşit katkıda bulunan yazarlar
Bu makalede ifade edilen tüm görüşler yalnızca yazarlara aittir ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini zorunlu olarak yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.