ÖZGELİŞTİRİLMİŞ ARAŞTIRMA makalesi
Front. Oncol., 11 Kasım 2026
Bölüm: Kanser Moleküler Hedefleri ve Terapötikleri
- YP
Yuanyuan Pei 1,2
- PL
Pinhao Li 1
- ZP
Zhenhong Pu 1
- DX
Dan Xu 1
- WY
Wenxiu Yang 1,2*
-
1. Patoloji Bölümü, Guizhou Tıp Üniversitesi İlişkili Hastanesi, Guiyang, Guizhou, Çin
-
2. Patoloji Bölümü, Guizhou Tıp Üniversitesi, Guiyang, Guizhou, Çin
Makale metrikleri
Özet
Arka Plan:

Multipel miyelom, belirgin moleküler heterojenite gösterir ve kemik iliği bağışıklık mikrovitamenu tarafından sürekli olarak etkilenir. Hücre yaşlanması, kararlı büyüme duraklaması yoluyla tümör yayılımını sınırlayabilirken, aynı zamanda yaşlanma ile ilişkili sekretor fenotip aracılığıyla yerel mikrovitamenu yeniden şekillendirir.
Yöntemler:
GSE6477 ve GSE72213 dizi dizileme kohortlarının entegre edilmesiyle aday genler, farklı ifade analizi, ağırlıklı gen ko-ifade ağacı analizi ve üç makine öğrenimi algoritması kullanılarak tarandı; ardından BHLHE40, iki örnekli Mendel randomizasyonu, bağışıklık infiltrasyon analizi, gen seti zenginleştirme analizi, tek hücre transkriptomisi ve in vitro aşırı ifade deneyleriyle birleştirilerek değerlendirildi.
Sonuçlar:
Toplam 1.928 farklı ifade eden gen ve 34 hücre yaşlanması ile ilişkili aday gen belirlendi. LASSO, SVM-RFE ve random forest birlikte CXCL12, ENO2 ve BHLHE40’ı ortaya koydu. Özellik seçimi için kullanılan aynı birleştirilmiş keşif kohortunda BHLHE40, belirgin bir AUC değeri 0.911 gösterdi. Mendel randomizasyonu analizi, genetik olarak tahmin edilen dolaşımdaki BHLHE40 seviyeleri ile MM riski arasında istatistiksel olarak anlamlı ters bir ilişki olduğunu işaret etti. Tek hücre transkptomik ve ssGSEA analizleri, BHLHE40 ifadesinin MM plazma hücrelerinde azaldığını ve seçili bağışıklık imzaları için göreceli zenginleşme skorlarıyla ilişkili olduğunu daha da gösterdi. In vitro deneyler, BHLHE40 aşırı ifadesinin MM hücre canlılığını ve EdU incorporasyonunu azalttığını, buna p16, p21 ve p53’ün yukarı düzenlenmesiyle ve tipik NF-κB yolak aktivasyonu ile tutarlı değişikliklerin (artmış p-p65 ve azalmış IκBα) eşlik ettiğini gösterdi.
Sonuç:
Çok seviyeli kanıtlar, BHLHE40’ı yaşlanmaya benzer büyüme durması ve MM’de bağışıklık mikroçevre durumu ile ilişkili bir aday düzenleyici olarak destekliyor. Dışsal tanı kohortlarının, fonksiyon kaybı veya kurtarma deneylerinin, kapsamlı yaşlanma fenotipleştirmenin ve in vivo doğrulamanın eksikliği göz önünde bulundurularak, güncel bulgular bunun klinik bir tanı biyomarkerı veya terapötik hedef olarak kurulması için yeterli değil.
1 Giriş
Multiple myeloma (MM), kemik iliğinde klonal plazma hücrelerinin anormal şekilde çoğalmasıyla karakterize, genetik, transkripsiyonel ve klinik fenotipik düzeylerde belirgin heterojenite gösteren hematolojik bir malignitedir. Proteasom inhibitörleri, immunomodülatuar ajanlar, monoklonal antikorlar ve hücre terapileri hastalık sonuçlarını iyileştirmiştir; ancak nüks, ilaç direnci ve devam eden klonal evrim MM’yi büyük ölçüde tedavi edilemez kılmaktadır (–). Farklı klonlar terapilik baskıya tutarsız yanıtlar verir ve belirli hücre popülasyonları tedaviden sonra kalıcı olarak varlığını sürdürebilir ve yeniden çoğalabilir. Bu nedenle, tanı sırasında belirlenen moleküler anormallikler hastalığın sürmesinin tam açıklaması için yeterli değildir ve MM hücre durumlarının korunması ve geçişinde rol alan düzenleyici faktörlerin belirlenmesi oldukça önem taşımaktadır.
MM’nin başlangıcı ve ilerlemesi yalnızca tümör hücrelerindeki içsel anormalliklerden değil, aynı zamanda kemik iliği mikrovir ortamının sürekli biçimlendirmesinden de kaynaklanır. Stromal hücreler, myeloid hücreler, T hücreleri ve sitokin ağları, iki yönlü etkileşimler aracılığıyla plazma hücre hayatta kalmasını, bağışıklıkten kaçınmayı ve terapilik toleransı desteklemektedir (). Önceki çalışmalar genellikle tümör hücrelerindeki moleküler değişimleri veya bağışıklık mikrovir ortamı değişikliklerini ayrı ayrı incelemiştir; bu nedenle malign plazma hücre durumlarını bağışıklık ekolojik bağlamlarıyla eşzamanlı biçimde birbirine bağlayabilen düzenleyici faktörler yeterince tanımlanmamıştır.
Hücresel yaşlanma (CS), genellikle stres kaynaklı kalıcı hücre döngüsü durması olarak ortaya çıkar ve p16-RB ile p53-p21 yollarındaki değişimler, kromatin yeniden şekillenmesi ve yaşlanmaya ilişkili sekretor fenotip (SASP) ile eşlik eder. Tümör biyolojik etkileri bağlama bağımlıdır: hücre içi büyüme durması tümör yayılımını sınırlayabilirken, kalıcı yaşlanmış hücreler ve SASP’leri kronik iltihabı, bağışıklık baskılanmasını ve tedavi direncini artırabilir (). Bu nedenle, birkaç belirteç proteininin artmış ifadesinin tek başına geri döndürülemez yaşlanmayı kanıtlamak için yeterli değildir; kapsamlı değerlendirme aynı zamanda hücre döngüsü durumunu, SA-β-gal aktivitesini, SASP’yi ve büyüme durmasının geri döndürülebilirliğini de içermelidir ().
MM’de kemik iliği T hücreleri tükenme ve bağışıklık yaşlanması özellikleri gösterebilir ve kemik iliği mezenkimal stromal hücreleri de erken yaşlanmaya benzer değişimler sergileyebilir (, ). CellAge gibi kaynaklar, yaşlanmayla ilgili genlerin sistematik taraması için bir temel sağlar (). Bu arada, tek hücreli çalışmalar, MM öncü evrelerindeki bağışıklık mikrov çevresi hasarını, tümör ve bağışıklık hücrelerinin birlikte evrimini ve refrakter MM’de alt klonlar ile mikrov çevresi arasındaki etkileşim kalıplarını betimlemiştir (–). Bu çalışmalar, aday faktörlerin genel ifade farklarının hücre tipi düzeyinde yerelleştirilmesi ve genetik ile fonksiyonel deneylerle daha ileri düzeyde doğrulanmasının gerektiğini göstermektedir.
BHLHE40 (basic helix-loop-helix ailesi üyesi e40), stres ve sirkadyen ritimle ilişkili, işlevleri belirgin biçimde hücre tipine bağlı olan bir transkripsiyon faktörüdür. Son çalışmalar, BHLHE40’ın CD8+ T hücresi tükenmesiyle ilişkili transkripsiyon programlarına katıldığını, pankreas kanseri mikroçevresinde nötrofil glikolizini sürüklediğini ve renk bağırsak kanserinde epitel-mezenkimal geçişi düzenleyebilecek olduğunu öne sürüyor (–); daha önceki özofagus skuamöz hücre karsinomundaki çalışmalar, DEC1/BHLHE40 aşırı ifadenin senesans benzeri bir fenotip indüklebileceğini ve daha iyi sağlıkla ilişkili olduğunu göstermişti (). Bu bulgular, BHLHE40’ı metabolik stres, bağışıklık durumu ve tümör hücresi davranışını birbirine bağlayan makul bir aday olarak konumlandırıyor; ancak etkilerinin diğer tümör modellerindeki yönü MM’ye doğrudan genetlenemez. NF-κB yolu, MM hücre hayatta kalmasında, stromal etkileşimlerde ve inflamatuar yanıtlarda kritik bir rol oynar ve birden fazla türde genetik anormallikle aktive edilebilir (–).
Bu arka plan göz önüne alındığında, bu çalışma hesaplamalı keşiften deneysel doğrulamaya kadar adımlı bir strateji benimsedi. İlk olarak, iki MM mikro dizili kohortu entegre edildi ve aday genler farklı ifade analizi, WGCNA, hücre senesansı gen setleri ve üç makine öğrenmesi algoritması aracılığıyla tarandı. Ardından, tamamlayıcı kanıt sağlamak için pQTL-MR, bağışıklık süzülmesi ve yol analizleri kullanıldı ve tek hücreli transkripsiyonomik veriler BHLHE40’ın başlıca hücre kaynaklarını yerelleştirmek için kullanıldı. Son olarak, BHLHE40 aşırı ifadesinin proliferasyon, senesans ilişkili proteinler ve NF-κB sinyallemesi üzerindeki etkileri MM hücre hatlarında değerlendirildi. Bu çalışmanın amacı, BHLHE40’ı yerleşik bir klinik biyomarker veya terapötik hedef olarak öngörmek yerine, MM’de senesans benzeri büyüme durması ile bağışıklık mikroçevre durumu arasındaki bağıntıyı kuran bir aday düzenleyici rolünü değerlendirmektir.
2 Materyaller ve yöntemler
2.1 Veri kaynakları
Bu çalışma, Gene Expression Omnibus (GEO, https://www.ncbi.nlm.nih.gov/geo/) üzerinden üç mikro dizili ifade profilleme veri seti elde etmiştir: GSE6477 (15 kontrol ve 73 MM örneği içeren) ve GSE72213 (3 kontrol ve 19 MM örneği içeren) ile GSE39754 (6 kontrol ve 170 MM örneği içeren). GSE39754, bağımsız bir dış validasyon seti olarak kullanılmıştır. Tek hücre transkriptomik (scRNA-seq) verileri, tümör mikroçevresi analizi için GSE271107 veri setinden (5 kontrol ve 4 MM örneği içeren) elde edilmiştir. Mendelian rastlantısallık (MR) analizinde kullanılan çoklu miyeloma için genom çapında ilişki çalışması (GWAS) özet istatistikleri, IEU OpenGWAS veri tabanından (https://gwas.mrcieu.ac.uk, veri seti ID: ieu-b-4957) alınmıştır. GEO, halka açık fonksiyonel genomik veriler için standartlaştırılmış bir arşiv kaynağıdır. Protein nitelik lokusu (pQTL) verileri, deCODE Genetics çalışmalarından (https://www.decode.com/summarydata/) elde edilmiş olup, 35.559 İzlandalı katılımcıdan GWAS verilerini ve 4.907 plazma proteini için nicel bilgileri kapsamaktadır. Hücre yaşlanması ile ilişkili gen setleri, Human Ageing Genomic Resources (HAGR)’ın CellAge veri tabanından (https://genomics.senescence.info/cells/) çıkarılmış ve resmi gen sembollerine dayanarak eşsizleştirilip standartlaştırılmıştır. Kaynaklar ve ayrıntılı bilgiler Ek Tablo S1‘de sunulmaktadır.
2.2 Farklı ifade analizi
Anyze’lerin hiçbir gene’e eşlenmemişi, dizüyesi platform açıklamalarına dayanarak çıkarıldı; birden fazla anyze’ın aynı gene karşılık vermesi durumunda, ortalama ifade değerleri avereps fonksiyonu kullanılarak hesaplandı. Arka plan düzeltmesi ve quantile normalizasyonundan sonra, iki veri setinde de ortak olan genler korundu ve birleştirildi. Platformlar arası parti etkilerini düzeltmek için ComBat ampirik Bayes yöntemi uygulandı () ve düzeltmeden önce ve sonra örnek dağılımlarını karşılaştırmak için ana bileşen analizi (PCA) kullanıldı. MM ile normal kontroller arasında farklı ifade edilen genleri (DEG’ler) belirlemek için limma kullanıldı (); eşikler |log2FC| > 0,5 ve FDR < 0,05 olarak belirlendi; temsilci farklı edilen genler hiyerarşik kümeleme sıcaklık haritaları kullanarak görselleştirildi.
2.3 Ağırlıklı gen ko-ifade ağılığı analizi
Ağırlıklı gen ko-ifade ağılığı analizi (WGCNA) yöntemi, birleştirilen veri setinden bir gen ko-ifade ağılığı oluşturmak için kullanıldı (). Aykırı örnekler çıkarıldıktan sonra, ölçeğiz ağılık dağılımı özelliklerini karşılamak için pickSoftThreshold fonksiyonu kullanılarak en iyi yumuşak eşik (β) belirlendi. Komşuluk matrisi hesaplandı ve ağılıktaki bağlanırlığı değerlendirmek için üstsel örtüşme matrisine (TOM) dönüştürüldü. Hiyerarşik kümeleme, bir gen kümeleme ağacı oluşturmak için TOM benzerliğine dayanarak yapıldı. Gen modülleri dinşik ağaç kesme algoritması kullanılarak belirlendi ve en küçük modül boyutu 60 gen olarak ayarlandı. Eigengene benzerliği 0,75’ten büyük olan modüller, bir modül kümeleme haritası oluşturmak için birleştirildi. MM ile ilişkili çekirdek modülleri belirlemek için modül eigengeneleri ile klinik özellikler arasındaki Pearson korelasyon katsayıları hesaplandı.
2.4 İşlevsel zenginleştirme analizi
WGCNA’dan elde edilen ana modül genleri, söz konusu farklı ekspresyon gösteren genler (DEG’ler) ve hücre yaşlanması ile ilişkili gen seti, yaşlanma ile ilişkili çekirdek aday genleri belirlemek amacıyla Venn kesişim analizi için kullanıldı. Ardından, bu çekirdek aday genlere yönelik Gen Ontolojisi (GO) ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) yol zenginleşme analizleri clusterProfiler R paketi kullanılarak gerçekleştirildi. Çoklu hipotez testi düzeltmesi için Benjamini-Hochberg (B-H) metodu uygulandı ve anlamlı zenginleşme eşiği olarak sahte bulma oranı (FDR) < 0,05 olarak belirlendi.
2.5 Makine öğrenmesi modeli inşası ve özellik seçimi
Çekirdek tanısal markerları taramak için aday gen setine üç algoritma sırasıyla uygulandı: en az mutlak sıkıştırma ve seçim operatörü (LASSO), destek vektör makinesi yinelemeli özellik elemesi (SVM-RFE) ve rastgele orman (RF). LASSO regresyonu, glmnet R paketi kullanılarak ikili dağılım modeli (alpha = 1) ile uyarlandı ve özellikler, katmanlı 10 katlı çapraz doğrulama yoluyla en az ceza katsayısında (lambda.min) seçildi. Benzer şekilde, doğrusal çekirdek kullanan ve aynı çapraz doğrulama stratejisini uygulayan SVM-RFE modeli, çapraz doğrulama hatasını minimize ederek en iyi özellik alt kümesini belirledi. RF modeli, randomForest R paketi (ntree = 500) kullanılarak kuruldu ve Ortalama Azalma Gini değeri 1’i aşan genler özellik değişkenleri olarak çıkarıldı. Üç algoritma arasındaki kesişim kümesi (yani örtüşen genler) nih aday genler olarak belirlendi. Ayırt edici performansın keşif amaçlı iç değerlendirmesini sağlamak için, pROC R paketi kullanarak alıcı işletme karakteristik (ROC) eğrileri oluşturuldu ve entegre keşif kohortunda karşılık gelen eğri altı alanı (AUC) hesaplandı. Ayrıca, dış doğrulama GSE39754 veri seti kullanılarak gerçekleştirildi.
2.6 Mendel rastlantısal dizilim analizi
İki örnekli Mendel randomizasyonu (MR) analizi, TwoSampleMR R paketi kullanılarak gerçekleştirildi. Çekirdek belirteçlerle genom çapında anlamlı ilişkiler gösteren (P < 5 × 10⁻⁸) plazma protein kantitatif özellik lokusları (pQTL’ler), aracılık değişkeni olarak seçildi. Bağımsız aracılık değişkenlerinin çıkarılması için 10.000 kb’lik fiziksel pencere ve r² < 0.001 bağlantılı denge eşiği ile clumping işlemi uygulandı. Maruz kalma ve sonuç verileri arasındaki etki alel yönleri uyumlaştırıldı; tutarsız alellere veya belirsiz yönlere sahip palindromik tek nükleotid polimorfizmleri (SNP’ler) çıkarıldı; alel frekansları çözülebilir palindromik lokuslar ise varsayılan parametreler (action = 2) doğrultusunda korundu ve düzeltildi. Her bir IV’nin istatistiksel gücü F = β²/SE² formülüyle hesaplandı ve olası yanlılığı kontrol etmek için F ≤ 10 olan zayıf aracılık değişkenleri analizden çıkarıldı. MR nedensel etki tahmini için birincil model olarak varyans ağırlıklı (IVW) yöntemi kullanıldı ve bu yöntem MR-Egger regresyonu, ağırlıklı medyan yöntemi, basit mod yöntemi ve ağırlıklı mod yöntemiyle tamamlandı. Varyanslılık, Cochran’s Q testiyle değerlendirildi; yatay pleiotropi MR-Egger intercept testiyle tarandı; nedensel çıkarım sonuçlarının sağlamlığı tek-SNP etki analizi, leave-one-out analizi ve funnel grafiklerinin bir araya getirilmesiyle doğrulandı.
2.7 ssGSEA tabanlı bağışıklık hücre infiltration analizi
GSVA R paketi’nden tek örnek gen seti zenginleştirme analizi (ssGSEA) algoritması, 28 bağışıklık hücre tipi için özgü olarak daha önce yayımlanmış bir belirteç gen seti () referans alınarak kullanıldı ve GSE6477 ile GSE72213 kohortlarından her örnek için göreli ssGSEA zenginleştirme skorları türetildi. Bu skorlardaki kontrol ve MM grupları arasındaki farklar karşılaştırıldı ve kutu grafikleri kullanılarak sunıldı. Buna ek olarak, BHLHE40 ekspresyonu ile 28 bağışıklık imzası skoru arasındaki ilişkiler korelasyon analizleri olarak hesaplandı. Toplu ekspresyondan elde edilen ssGSEA skorları tümör saflığını ve hat kompozisyonunu yansıtabileceğinden, bunlar bağışıklık hücre bolluğunun doğrudan ölçümleri olarak yorumlanmadı. Tüm sonuçlar ggplot2 R paketi kullanılarak görselleştirildi.
2.8 GSEA ve GSVA analizi
BHLHE40 ile ilişkili biyolojik yolları değerlendirmek için gen seti zenginleştirme analizi (GSEA) () ve gen seti değişim analizi (GSVA) () kullanıldı. BHLHE40’ın medyan ekspresyon seviyesi eşik olarak alınarak örnekler yüksek ve düşük ekspresyon gruplarına ayrıldı. GO ve KEGG referans gen setleri her ikisi de Molecular Signatures Database’den (MSigDB, sürüm v2023.2.Hs; https://www.gsea-msigdb.org/gsea/msigdb/) elde edildi. GSEA için, BHLHE40 yüksek versus düşük ekspresyon karşılaştırması için tahmin edilen log2 kat değişimlerinden elde edilen sıralanmış bir gen listesi, 1.000 permütasyon ile oluşturuldu. P değerleri Benjamini-Hochberg metodu ile çoklu hipotez testi için düzeltildi ve düzeltilmiş P < 0,05 istatistiksel olarak anlamlı kabul edildi.
2.9 scRNA-seq analizi
GSE271107 tek hücreli transkriptomik verilerinin analizi Seurat R paketi kullanılarak gerçekleştirildi. Kalite kontrolü sırasında, aşağıdaki kriterlerle düşük kaliteli hücreler elendi: 200 <= nFeature_RNA <= 6000, 500 <= nCount_RNA <= 50000 ve mitokondriyel gen ekspresyon oranı < 10%; çift hücrelerin (doublet) belirlenmesi ve uzaklaştırılması için DoubletFinder kullanıldı. Ham ekspresyon matrisi log-normalize edildi ve en yüksek değişkenliğe sahip 2.000 gen seçildi. Veriler, anchor tabanlı korelasyonel korelasyon analizi çerçevesi kullanılarak örnekler arasında bütünleştirildi, ardından ilk 20 temel bileşen kullanılarak PCA ve UMAP görselleştirmesi yapıldı. Hücre kümeleri, temel belirleyici genler, önceki literatür ve CellMarker 2.0 kullanılarak anotlandı. BHLHE40 ekspresyonu hücre tipi ve hastalık grubuna göre incelendi; hücre düzeyindeki karşılaştırmalar, aynı kaynaktan alınan hücrelerin bağımsız gözlemler olmaması nedeniyle keşif amaçlı olarak yorumlandı. Hücreler arası iletişim ağlarının çıkarılması için CellChat kullanıldı.
2.10 Hücre kültürü ve lentiviral aşırı ekspresyon modelinin oluşturulması
İnsan malign olmayan B lenfoblastoid hücre hattı HMy2.CIR ile MM hücre hatları U266, MM.1S, NCI-H929 ve RPMI-8226’nın tümü Procell’den (Wuhan, Çin) temin edildi ve sırasıyla RPMI-1640 baz medyumunda, %10 fetal ine serumu ve %1 penisilin-streptomisin eklenerek kültüre edildi. Hücreler, nemlendirilmiş inkübatörde 37 °C ve %5 CO2 koşullarında muhafaza edildi. Bir in vitro aşırı ekspresyon modeli kurmak için, tam uzunlukta BHLHE40 dizisini taşıyan rekombinant lentiviral vektörler ve karşılık gelen negatif kontrol boş vektörü kullanılarak sırasıyla NCI-H929 ve RPMI-8226 hücreleri transfekte edildi ve tüm işlemler üreticinin talimatlarına uygun olarak gerçekleştirildi. Hedef gen Sangon Biotech tarafından (Shanghai, Çin) sentezlendi ve lentiviruse paketlenmiştir. Transfektikten sonra, puromisin seçimiyle kararlı BHLHE40-azırı ekspresyonlu hücre hatları elde edildi.
2.11 Nicel gerçek zamanlı PCR
Topel hücre RNA’sı, üreticinin talimatlarına uygun olarak TRIzol reaktörü (Invitrogen, ABD) kullanılarak izole edildi. RNA konsantrasyonu ve saflığı, NanoDrop 2000 spektrofotometresi (Thermo Fisher Scientific, ABD) kullanılarak belirlendi ve A260/A280 oranı 1,8’den büyük olan numuneler sonraki deneyler için seçildi. Bir mikrogram total RNA, cDNA Synthesis SuperMix (Yeasen, Shanghai, Çin, katalog numarası: 11141ES60) kullanılarak cDNA’ya ters transkribe edildi.
Kantitatif gerçek zamanlı PCR, QuantStudio 5 Real-Time PCR Sistemi (Applied Biosystems, ABD) üzerinde, 20 μL’lik reaksiyon sisteminde qPCR SYBR Green Master Mix (Yeasen, katalog numarası: 11198ES08) kullanılarak ve her numune için üç teknik tekrar ile gerçekleştirildi. Amplifikasyon protokolü şu şekildeydi: başlangıç denatürasyonu 95 °C’da 30 s; 95 °C’da 5 s denatürasyon ve 60 °C’da 30 s annealing/uzantı içeren 40 döngü; ardından amplifikasyon özgüllüğünü doğrulamak için erime eğrisi analizi. Hedef genlerin bağıl ekspresyon seviyeleri, iç referans olarak GAPDH kullanılarak 2-ΔΔCt metodu ile hesaplandı. Primer dizileri Ek Tablo S2‘de listelenmiştir.
2.12 Western blot analizi
Topal hücresel protein, proteaz ve fosfataz inhibitörleri eklenen RIPA lizis tamponu kullanılarak çıkarıldı. Protein konsantrasyonları, BCA protein analiz kiti (Thermo Fisher Scientific, USA) kullanılarak belirlendi. Eşit miktarlarda protein (30 μg) SDS-PAGE ile ayrıştırıldı ve PVDF membranlara aktarıldı. Membranlar, oda sıcaklığında 1 süreyle TBST içinde %5 yağsız süt ile (fosforile edilmiş protein tespitinde %5 BSA kullanıldı) bloke edildi, ardından ilgili birincil antikorlarla 4 °C’de gece boyu inkübe edildi. Birincil antikorlar şunları içeriyordu: anti-BHLHE40 (HUABIO, Hangzhou, katalog numarası HA721748, 1:1000), anti-p16INK4a (ER2001-30, 1:1000), anti-p21 (HA724295, 1:1000), anti-p53 (HA601315, 1:1000), anti-p65 (Abmart, Shanghai, T55034S, 1:1000), anti-p-p65 (S529) (HUABIO, ET1604-27, 1:1000), anti-IκBα (ET1603-6, 1:1000) ve iç referans olarak anti-GAPDH (1:5000). TBST ile iyi şekilde yıkandıktan sonra membranlar, HRP eşlik eden ikincil antikorlarla (1:5000) oda sıcaklığında 2 süreyle inkübe edildi. Protein bantları ECL kimyasal ışıma rejanetleri ile görüntülendi ve gri değerler ImageJ yazılımı kullanılarak kantitatif olarak belirlendi. Hedef proteinlerin bağıl ifade düzeyleri GAPDH’ye göre normalize edildi.
2.13 Hücre proliferasyon testi
Hücre proliferasyonu CCK-8 testi ve EdU dahil etme deneyleriyle değerlendirildi. CCK-8 testi için, logaritmik büyüme fazındaki hücreler kuyucuk başına 3 × 10³ hücre olacak şekilde 96 kuyucuklu plakalara ekildi ve her grup için beş tekrar kuyucuk kullanıldı. 0, 24, 48, 72 ve 96. saatlerde her kuyucuga CCK-8 reaktifi (APEXBIO, ABD) eklendi ve hücreler 37 °C’da karanlıkta 2 saat inkübe edildi. Absorbans 450 nm’de mikroplak okuyucu ile ölçüldü. Boş kuyucular çıkarıldıktan sonra ham absorbans değerleri (OD450) proliferasyon eğrileri oluşturmak için kullanıldı. EdU deneyinde ise kit talimatlarına (APEXBIO, ABD, K1078) uygun olarak çalışma gerçekleştirildi: 5 × 10⁴ hücre toplandı, EdU çalışma çözeltisi ile inkübe edildi ve 37 °C, %5 CO₂’li inkübedöre 2 saat konuldu. Santrifüjleme ve yıkamadan sonra hücreler oda sıcaklığında 15 dakika 4% paraformaldehid ile sabitlendi, 15 dakika 0,3% Triton X-100 ile geçirgenleştirildi, ardından Click tepkimesi boyama ve DAPI karşı boyama uygulandı. Hücre süspansiyonu poli-L-lizin ile kaplı lameller üzerine damlatıldı ve floresan mikroskop altında en az beş rastgele alan görüntülendi. EdU pozitif oranı, EdU pozitif hücre sayısının toplam DAPI pozitif hücre sayısına bölünmesi ve %100 ile çarpılmasıyla hesaplandı.
2.14 İstatistiksel analiz
İstatistiksel analizler R 4.5.3 ve GraphPad Prism 10.0 kullanılarak gerçekleştirildi. Veriler en az üç bağımsız tekrarın ortalaması ± SD olarak sunuldu. Normallik ve eşit varyans Shapiro–Wilk ve Levene testleriyle değerlendirildi. Grup karşılaştırmaları Student’s t-testi (iki grup) veya Tukey’s post-hoc testi ile tek yönlü ANOVA (çoklu grup) kullanılarak yapıldı. Zaman içinde CCK-8 verileri zaman, grup ve etkileşim etkilerini değerlendirmek için iki yönlü tekrar ölçümlü ANOVA (veya küresellik ihlal edildiğinde linekarışık etkili model) ile analiz edildi. İki taraflı P < 0,05 anlamlı kabul edildi.
3 Bulgular
3.1 MM DEG’lerinin Belirlenmesi
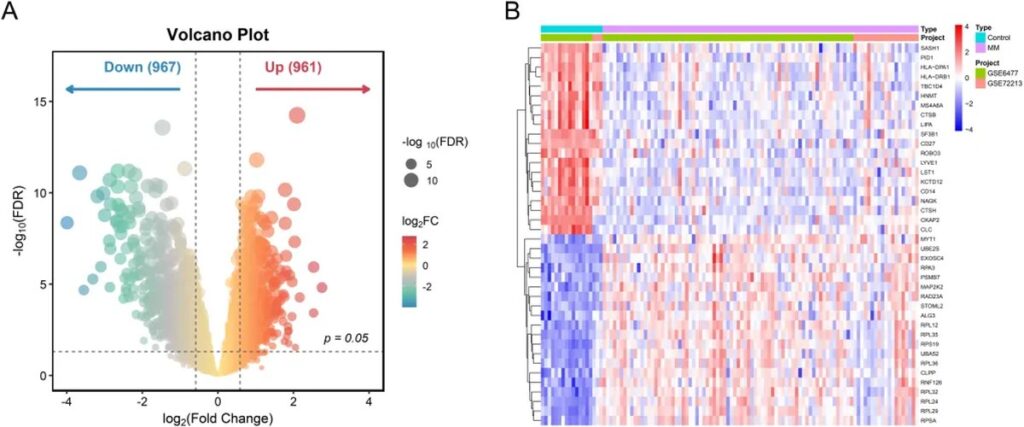
GEO veritabanından GSE6477 ve GSE72213 adlı iki mikro dizili veri seti elde edildi. ComBat algoritması ile entegrasyon ve parti etkisi düzeltmesinin ardından yapılan bileşenler analizi (PCA) boyut indirgeme grafikleri, iki kohortun örnek dağılımı bölgelerinin büyük ölçüde örtüştüğünü, dolayısıyla parti etkilerinin etkili biçimde kontrol edildiğini gösterdi (Ek Figürler S1A, B). Farklı ifade analizi, normal ve MM grupları arasında toplam 1.928 farklı ifade edilen gen (961’i yukarı, 967’si aşağı yönde düzenlenmiş) belirledi (Şekil 1A) (Ek Tablo S3). Hiyerşik kümeleme ısı haritaları, en büyük ifade değişimini gösteren en üst 20 yukarı ve aşağı yönde düzenlenmiş geni gösterdi; bu genler birleştirilmiş kohortta hastalık durumuyla tutarlı ifade desenleri sergiledi (Şekil 1B).
Şekil 1
3.2 WGCNA ve aday genlerin temel bileşenlerinin fonksiyonel zenginleştirilmesi
CellAge veritabanından 1.061 geni içeren bir hücresel yaşlanma geni seti (Ek Tablo S4) elde edildi. Bütünleştirilmiş veri seti temel alınarak, MM ile ilişkili gen ko-ifade etme örüntülerini incelemek amacıyla ağırlıklı bir gen ko-ifade etme ağı oluşturuldu. Optimal yumuşak eşik değeri β = 5 olarak belirlendi ve bu değer, oluşturulan ağı ölçek-serisi topolojik dağılıma uygun hale getirdi (Ek Şekil S1C). Hiyerarşik kümeleme ve dinamik ağ kesimi sonrasında genler birkaç ko-ifade etme modülüne ayrıldı (Şekil 2A). Modüller ile klinik özellikler arasındaki korelasyon analizi, Turquoise modülünün MM durumuyla en güçlü ilişkiye sahip olduğunu gösterdi (r = 0,74, P = 4 × 10⁻²⁰; Şekil 2B). Bu modül içinde gen önemi, modül üyeliğiyle yüksek derecede pozitif korelasyona sahipti (r = 0,78, P < 1 × 10⁻²⁰⁰; Şekil 2C) ve bunun hastalıkla güçlü ilişkisini destekledi. Turquoise modül genleri ile söz konusu farklı ifade eden genlerin ve 1.061 hücresel yaşlanma geninin kesişimi, 34 örtüşen gen üretti; bu genler hücresel yaşlanma, farklı ifade etme ve MM fenotipini birbirine bağlayan çekirdek aday genler olarak adlandırıldı (Şekil 2D). Bu 34 örtüşen gen (Turquoise WGCNA modül genleri, DEGs ve CellAge yaşlanma geni setinin kesişimi) listelenmiştir (Ek Tablo S5).
Şekil 2
GO zenginleştirme analizi, bu 34 genin öncelikle strese yanıt, savunma tepkisi ve inflamatuar tepkisi gibi bağışıklık ve strese ilgili terimler içinde zenginleştiğini gösterdi (Şekil 2E). KEGG yol analizi, bu genlerin sitokin-sitokin reseptör etkileşimi, NF-κB sinyal yolu ve TNF sinyal yolu dahil olmak üzere önemli ölçüde zenginleşmiş yollar içerdiğini ortaya koydu (Şekil 2F).
3.3 Çekirdek belirleyicilerin makine öğrenmesiyle ayıklanması
34 geni içeren kümeden aday genleri önceliklendirmek için üç makine öğrenimi algoritması (LASSO, SVM-RFE ve RF) kullanıldı. 10 katlı çapraz doğrulama sonucunda LASSO regresyon modeli, en uygun ceza parametresi λ altında 12 özellik genini korudu (Şekiller 3A, B). SVM-RFE modeli, 13 özellik seçildiğinde en düşük çapraz doğrulama hata oranına (0,0182) ve en yüksek doğruluğa (0,982) ulaştı (Şekiller 3C, D). Ortalama Azalma Gini eşiği 1’den büyük kullanılarak RF modeli 11 özellik genini ayırdı; bunlar arasında BHLHE40 en yüksek önem skoruna sahipti (Şekiller 3E, F). Bu üç çıktının kesişimi CXCL12, ENO2 ve BHLHE40’ı verdi (Şekil 3G). Bu genler MM örneklerinde kontrollere göre baskılanmıştı (P < 0,001; Şekil 3H). Özellelik önceliklendirmesinde kullanılan aynı bütünleştirilmiş keşif kohortunda BHLHE40 için görünür AUC 0,911, ENO2 için 0,895 ve CXCL12 için 0,786 idi (Şekil 3I). Ancak dış test olmadan iç görünür AUC’ler olumlu yanlılığa tabidir. GSE39754’te (170 MM, 6 kontrol) ENO2 (P < 0,01) ve BHLHE40 (P < 0,05) farklı ifade gösterirken, CXCL12 göstermedi (ns; Eklek Şekil S2A). Tekli marker AUC’leri ENO2 için 0,833, CXCL12 için 0,611 ve BHLHE40 için 0,744 idi (Eklek Şekil S2B). Sınırlı kontrol sayısı (n = 6), tek değişkenli değerlendirme ve bu kohorttaki özellik seçimi olmaması nedeniyle bunlar, tanısal bir sınıflandırıcının doğrulanması değil, betimleyici dış kontrollerdir.
Şekil 3
3.4 İki örneklemlili MR analizi
Üç örneklemli MR analizi, aday genlerin üçünden genetik olarak tahmin edilen plazma protein seviyeleri ile MM riski arasındaki ilişkiyi değerlendirmek için yapıldı. Bu üç gen arasında yalnızca BHLHE40, IVW analizinde sınırlı bir gösterilen ilişki sergiledi. On bağımsız BHLHE40 SNP’si enstrüman değişkeni olarak kullanıldığında, IVW tahmini MM riskiyle ters ilişkiyi işaret etti (P = 0.047; OR < 1). Cochran’s Q testi istatistiksel açıdan anlamlı bir heterojenlik göstermedi (P = 0.564) ve MR-Egger kesim testi yöneldi pleiotropiye dair bir kanıt sunmadı (P = 0.308; Şekil 4A). Saçılım, orman, huni ve leave-one-out grafikleri bu tahminle uyumluuydu (Şekil 4B–E). Sınırlı P değeri, maruziyat enstrümanı olarak plazma pQTL’lerinin kullanımı ve kolokalizasyon analizinin olmaması göz önüne alındığında, bu bulgun keşif niteliği taşıdığı ve BHLHE40’ın MM üzerindeki nedensel koruyucu etkisini kanıtlamadığı değerlendirilmelidir.
Şekil 4
3.5 Bağışıklık süzülmesi analizi
ssGSEA algoritması, her örneklemde 28 bağışıklık imzasının göreli zenginleşme puanlarını türetmek için kullanıldı. Isı haritası (Şekil 5A) kontrol ve MM grupları arasında farklı puan örüntüleri gösterdi. Kutu grafiği (Şekil 5B) aktive olmuş B hücreleri, makrofajlar ve myeloid kökenli baskılayıcı hücreler dahil imzalar için puan farklarını gösterdi. Ayrıca bir korelasyon ısı haritası (Ekleme Şekil S3) 28 bağışıklık hücre alt grubu arasındaki karmaşık eş-süzülme örüntülerini ve karşılıklı korelasyonları ortaya koydu. Ardından BHLHE40 ekspresyonu ile bağışıklık imzası puanları arasındaki korelasyonlar hesaplandı (Şekil 5C–F). BHLHE40 ekspresyonu, aktive olmuş CD4+ T-hücre imzası (r = 0.26, P = 0.013), aktive olmuş dendritik hücre imzası (r = 0.23, P = 0.03) ve nötrofil imzası (r = 0.21, P = 0.043) ile pozitif ilişkilidir. Bu ilişkilerin, toplu ssGSEA puanlarının örnek hücre bileşimi ve hat-spesifik ekspresyon tarafından etkilendiği için BHLHE40’ın bağışıklık hücre süzülmesini doğrudan düzenlediğine dair doğrudan kanıt olarak yorumlanmaması gerektiğini unutmamak gerekir.
Şekil 5
3.6 GSEA ve GSVA
Bu çalışmada, BHLHE40’ın biyolojik işlevleri ve ilgili düzenleyici ağları değerlendirilmek için gen seti zenginleştirme analizi (GSEA) ve gen seti değişim analizi (GSVA) kullanılmıştır. GSEA sonuçları, BHLHE40 ifadesinin miyeloid lökosit aktivasyonu, klasik NF-κB sinyal iletimi ve IL-17/TNF sinyal yolları gibi bağışıklık ve iltihaplanma ile ilgili biyolojik süreçlerde olumlu, ribozom biyogenezinde ve protein çevrimi ile ilgili yollarda ise olumsuz zenginleştiğini göstermiştir (Şekiller 6A, B).
Şekil 6
Ayrıca, GSVA sonuçları BHLHE40 yüksek ve düşük ifade alt grupları arasında fonksiyonel aktivasyon durumlarının farklı olduğunu göstermiştir. BHLHE40 yüksek ifade grubunda, arakonik asit metabolizması ve yağ asidi β-oksidasyonu gibi metabolik yollar önemli ölçüde yükselirken, hücre döngüsü, T hücre reseptörü sinyal iletimi ve mTOR sinyal yolları önemli ölçüde alçalmıştır (Şekiller 6C, D). Bu sonuçlar, BHLHE40’ın bağışıklık-iltihaplanma yanıtlarını ve metabolik yeniden programlamayı düzenleyerek MM’nin ilerlemesine katılabileceğini düşündürmektedir.
3.7 Tek hücreli analiz
scRNA-seq verileri Seurat hattı kullanılarak işlenmiştir. Kalite kontrolü, çift filtreleme ve parti etkisi düzeltmesinden sonra, toplam 51.862 kaliteli tek hücre korunmuş ve UMAP boyut indirgeme ile kümelemeden sonra 24 hücre alt kümesi elde edilmiştir (Şekil 7A). Klasik işaret genlerinin ve CellMarker 2.0 veritabanının entegrasyonu ile bu alt kümeler 13 temel hücre popülasyonuna atanmıştır (Şekil 7B). Özellik grafikleri, ilgili hücre kümelerinde MZB1 (plazma hücreleri), CD3E (T hücreleri) ve CD14 (monositler) gibi işaret genlerinin spesifik ifadesini göstermiştir (Ekleme Şekil S4A). Nokta grafikleri, her soytaranın en üst 5 işaret geninin ifade oranını ve ortalama ifade düzeyini göstererek hücre alt popülasyonlarının atama sonuçlarını desteklemiştir (Ekleme Şekil S4B).
Şekil 7
Hücre düzeyinde ifade analizi, BHLHE40’un hücre alt popülasyonlarının çoğunda ifade edildiğini, T hücreleri ve monositlerde zenginleştiğini ve plazma hücrelerinde algılanabilir düzeyde ifade edildiğini gösterdi (Şekil 7C). Hücre düzeyinde bir karşılaştırma, MM örneklerinden plazma hücrelerindeki BHLHE40 ifadesinin kontrol örneklerindeki hücrelere göre daha düşük olduğunu ortaya koydu (Şekil 7D). Bu gözlem, kitelikleştirilmiş transkptomik analizle yön açısından tutarlıydı; ancak donor düzeyinde pseudobulk veya karma etkili modelleme kullanmadığı için keşif amaçlı olarak değerlendirilmelidir. Annotasyonlanmış tüm hücre tipleri boyunca BHLHE40 için katmanlı MM-kontrol karşılaştırması sunulmaktadır (Eklek Şekil S4C).
Hücrelerarası iletişimin MM mikroçevresinde çıkarımında CellChat tabanlı analiz kullanıldı. Daire grafikleri, 13 hücre popülasyonu arasındaki öngörülen etkileşim sıklığını ve iletişim gücünü gösterdi (Şekil 7E–G). Plazma hücreleri, monositler ve T-hücre alt popülasyonları nispeten yoğun çıkarılmış bağlantılar gösterdi. Bu öngörüler hipotez üreten niteliktedir ve yönelliği veya fonksiyonel ligen-reseptör etkileşimlerini kanıtlamaz.
3.8 BHLHE40’un MM hücreleri üzerindeki etkisi
BHLHE40’un in vitro ifade desenini değerlendirmek için, malign olmayan bir B lenfoblastoid hücre çizgisi (HMy2.CIR) ve dört MM hücre çizgisi (U266, MM.1S, NCI-H929 ve RPMI-8226) içindeki mRNA ve protein düzeylerini inceledik. BHLHE40 ifadesi, test edilen tüm MM hücre çizgilerinde HMy2.CIR’e göre daha düşüktü (Şekil 8A–C). HMy2.CIR’in normal plazma hücre kontrolü değil, malign olmayan bir B lenfoblastoid hücre çizgisi olması nedeniyle, bu karşılaştırma yalnızca malign olmayan bir B-hücre referansı sağlar ve normal plazma hücrelere göre ifade farklarını ortaya koyamaz.
Şekil 8
BHLHE40 ifade düzeylerinin NCI-H929 ve RPMI-8226 hücrelerinde son derece düşük olması nedeniyle, bu iki hücre hattı kararlı aşırı ifade modelleri kurmak için seçildi. BHLHE40’ın hem mRNA hem de protein düzeyinde başarılı şekilde yukarı düzenlenmesi RT-qPCR ve Western blot ile doğrulandı (Şekiller 8D–F). Ardından BHLHE40’ın MM hücre büyümesindeki biyolojik işlevi incelendi. CCK-8 testi, 96 saatlik gözlem süresi boyunca BHLHE40 aşırı ifadenin NCI-H929 ve RPMI-8226 hücrelerinin canlılığını önemli ölçüde azalttığını gösterdi (Şekil 8G). EdU dahil etme testi, bu büyüme baskılayıcı etkini daha da doğruladı; çoğalan hücrelerin oranı, boş vektör kontrol grubuna kıyasla OE-BHLHE40 grubunda önemli ölçüde azaldı (Şekiller 8H, I). Özetle, bu bulgular BHLHE40’ın MM hücre çoğalmasında önemli ölçüde baskılayıcı bir etki gösterdiğini ortaya koyar.
3.9 BHLHE40 yaşlanmaya benzer değişiklikleri ve NF-κB aktivasyonunu tetikler
BHLHE40-mediated büyüme baskılamasıyla ilişkili moleküler değişiklikleri incelemek için p53, p21 ve p16’ya bakıldı. Boş vektör grubuna kıyasla, BHLHE40 aşırı ifadesi NCI-H929 ve RPMI-8226 hücrelerinde p53, p21 ve p16 protein düzeylerini artırdı (Şekiller 9A–C). CCK-8 ve EdU bulguları ile birlikte, bu sonuçlar yaşlanmaya benzer büyüme durmasıyla tutarlıdır, ancak geri döndürülemez hücre yaşlanmasını kanıtlamaz. GSEA sonuçlarına dayanarak, ana NF-κB yolak proteinleri de değerlendirildi. Toplam p65 düzeyleri büyük ölçüde değişmeden kaldı, ancak OE-BHLHE40 grubunda p65 fosforilasyonu artmış ve IκBα azalmıştır (Şekiller 9D–F). Bu değişiklikler, kanonik NF-κB yolak aktivasyonuyla tutarlıdır; bu yolanın büyüme durması fenotipini aracılıp aracılmadığını belirlemek için yolak baskılaması veya kurtarma deneyleri gereklidir.
Şekil 9
4 Tartışma
Multiple myeloma (MM), kemik iliğinde klonal plazma hücrelerinin anormal şekilde çoğalmasıyla karakterize, hem moleküler genetik hem de klinik fenotipik düzeyde son derece yüksek heterojenite gösteren bir hematolojik malignitedir. Son yıllarda, proteazom inhibitörleri, immunomodülatuar ajanlar ve hedefli monoklonal antikorlar gibi yeni terapiler genel sağkalımı önemli ölçüde iyileştirmiş olsa da, farklı klonların terapötik baskıya yönelik heterojen yanıtları ve devam eden klonal evrim, MM’de nüks ve ilaç direnci zorluklarını sürdürmektedir. MM ilerlemesi, yalnızca tümör hücrelerindeki intrinsic genomik anormalliklerle değil, aynı zamanda kemik iliği mikroçevresindeki stromal hücreler, myeloid hücreler, T hücreleri ve karmaşık sitokin ağlarıyla iki yönlü etkileşimler ve bu hücrelerce sürekli biçimde şekillendirilmeyle sürüdürülmektedir. Bu ekosistemde, hücresel yaşlanmanın (senescence) rolü giderek artan bir ilgi görmektedir: hücre içi (cell-autonomous) kararlı büyüme duraklaması tümör yayılımını sınırlayabilirken, kalıcı hayatta kalan yaşlanmış hücreler, pro-inflamatuar yaşlanma-associated sekretor fenotip (SASP) aracılığıyla immünsüpresyon ve terapötik direnci ortaya çıkarabilmektedir.
Bu sorunu sistematik olarak araştırmak için çalışma, önce farklı ifade analizi ve ağırlıklı gen ko-ekspresyon ağacı analizi ile CellAge yaşlanma veritabanıyla birleştirilerek 34 hücresel yaşlanma ile ilişkili aday geni taramıştır. İşlevsel zenginleştirme analizi, bu genlerin stres yanıtı, savunma yanıtı ve NF-κB ve TNF gibi temel inflamatuar sinyal yollarında belirgin şekilde zenginleştiğini ortaya koymuştur. Bulgu, yaşlanan hücrelerin genellikle aktif bir stres-inflamatuar metabolik durumda olduğu MM ve hematolojik malignansilerdeki yaşlanma mikroçevresi araştırmalarıyla uyumludur (Colucci ve ark., 2025; Hu ve ark., 2021; Plakhova ve ark., 2023) (–). Ardından çalışma, daha ileri tarama için üç makine öğrenmesi algoritmasını birleştirmiş ve keşif kohortunda yüksek iç ayırt edicilik performansı (AUC = 0.911) ve MM örneklerinde anlamlı baskılanma gösteren BHLHE40’ı temel aday faktör olarak belirlemiştir.
BHLHE40, stres ve sirkadyen ritimle ilişkili transkripsiyon faktörleri ailesine ait olup, önceki araştırmalar farklı hücresel ve doku mikroçevrelerindeki karmaşık çok yönlü etkilerini ortaya koymuştur. Bağışıklık düzenleme alanında BHLHE40, CD8+ T hücre yorgunluğuyla ilişkili programlara katılmaktadır (); solid tümör mikroçevresinde BHLHE40, pankreas kanserinde nötrofil glikolizini sürükleyebilir ve kolon kanserinde transkripsiyonel ve fenotipik evrimle ilişkilidir (, ). Özdeş bir özgün çalışma, özofagus skuamöz hücre karsinomunda da DEC1/BHLHE40 aşırı ifadenin yaşlanmaya benzer bir fenotipi indükleyebileceği ve daha iyi prognozla ilişkilidir (). Bu bulgular, BHLHE40’ın metabolik stres, bağışıklık durumu ve tümör hücresi davranışını birbirine bağlayabileceği olasığını desteklerken, aynı zamanda eylem yönünün bağlama özgü olduğunu da vurgulamaktadır. Diğer tümör modellerinden elde edilen sonuçların doğrudan genellenemeyeceği göz önüne alındığında, çalışma BHLHE40’ın MM’de belirgin ölçüde azalmış ifade gösterdiğini gözlemiş ve bunun bu spesifik hematolojik malignans bağlamında hücre proliferasyonunu baskılama potansiyeli taşıyabileceğini öne sürmüştür.
Konvansiyonel kesit kesimli transkriptomik çalışmaların doğasında bulunan potansiyel ters nedensellik yanlığını aşmak için bu çalışma iki örneklemli Mendelian rastgeleleştirme analizini dahil etmiştir. Birincil ters varyans ağırlıklı analiz, genetik olarak öngörülen dolaşımdaki BHLHE40 seviyelerinin MM riski ile yön olarak tutarlı bir şekilde negatif ilişki gösterdiğini (β < 0, P = 0.047) ortaya koymuştur. MR, yaşam boyu ortalamadaki nedensel etkilerin yönünü tahmin ettiğinden ve bazı duyarlılık analizlerinin katı istatistiksel eşiklere ulaşamadığından, bu genetik kanıt transkriptomik gözlemlere tamamlayıcı ve keşif niteliğinde kabul edilmeli; BHLHE40’ın MM gelişimine karşı bağımsız olarak nedensel koruyucu etkisini tek başına ispatlamak için yeterli değildir.
GSEA ve GSVA, BHLHE40’un yolak düzeyinde potansiyel biyolojik bağlamını ortaya koydu. GSEA sonuçları, yüksek BHLHE40 ifadesinin miyeloid lökosit aktivasyonu, kanonik NF-κB sinyal iletimi ve IL-17/TNF yollarında pozitif zenginleşme gösterirken, ribozom biyogenezinde ve protein çevrimi süreçlerinde negatif zenginleşme gösterdiğini gösterdi. GSVA, arakidonik asit metabolizmasının ve yağ asidi β-oksidasyonunun yüksek ifade grubunda artırıldığını, hücre döngüsü, T hücre reseptörü sinyal iletimi ve mTOR yollarının ise baskılandığını daha ileri sürdü. Dikkat çerecek şekilde, hücre döngüsü yolaklarının baskılanması, BHLHE40 aşırı ifadesinden sonra in vitro’da gözlemlenen azalmış hücre canlılığı ve EdU dahil edilmesiyle uyumluydu ve NF-κB’nin pozitif zenginleşmesi artmış p65 fosforilasyonu ve IκBα yıkımıyla örtüşüyordu. Bu çapraz analiz tutarlılığı, bulguların biyolojik tutarlılığını artırır; ancak yolak zenginleşmesi yalnızca hipotez üretmek için kullanılır ve mekanistik doğrulamayı yerine geçiremez (). Ayrıca, söz konusu zenginleşme sonuçları gözlemsel transkriptomik verilere dayanmakta, hücre heterojenliği ve gruplandırma stratejilerinden etkilenmiş olabilir ve bu çalışma metabolik akışı veya mTOR kinaz aktivitesini doğrudan ölçmedi. Bu nedenle, daha muhafazakör bir yorum, BHLHE40 ifadesinin bağışıklık-iltihabi durum, metabolik durum ve hücre proliferasyon programlarıyla eş değişim gösterdiği, ancak söz konusu yolların tümünü doğrudan yönlendirmediği şeklindedir.
Bağışıklık hücreli süzülmü analizi, BHLHE40 ile MM kemik iliği bağışıklık ekosistemi arasındaki ilişkiyi ayrıca desteklemektedir. Kontrol grubuyla karşılaştırıldığında, MM örnekleri aktive B hücreleri, makrofajlar ve myeloid kökenli baskılayıcı hücreler (MDSC’ler) gibi alt popülasyonların ssGSEA skorlarında anlamlı farklılıklar gösterirken; BHLHE40 ifadesi, aktive CD4+ T hücreleri, aktive dendritik hücreler ve nötrofillerin skorlarıyla pozitif korelasyon göstermiştir. Bu durum, yüksek BHLHE40 ifadesinin, belirli bağışıklık hücre kompozisyonu veya aktivasyon durumlarındaki değişimlerle birlikte geldiğini işaret etmektedir. Bununla birlikte, bulk transkriptomikten elde edilen ssGSEA skorları nispi zenginliği yansıtır ve tümör saflığı ile hatza özgü ifadenin yol açtığı müdahalelere açıktır; ayrıca dekonvolisyon algoritmalarının doğruluğu, referans kümesine ve veri ön işleme adımlarına güçlü biçimde bağlıdır (). Sonraki tek hücreli verilerin, T hücreleri ve monositlerde BHLHE40’ın daha yüksek bolluğuna işaret etmesi göz önüne alındığında, bulk düzeyde gözlemlenen pozitif korelasyonlar, yalnızca malign plazma hücrelerindeki içsel transkripsiyonel değişimlerden ziyade, artan bağışıklık hücre oranlarından da kısmen kaynaklanabilir. Bu nedenle, bu bulgular bağışıklık düzenleyici mekanizmalara dair doğrudan kanıt yerine, BHLHE40’ı bağışıklık mikroçevre durumuyla ilişkilendiren bir ilişkisellik kanıtı olarak değerlendirilmelidir.
Bireysel hücre RNA dizileme analizi, söz konusu heterojeniliği çözmek için bireysel hücre çözünürlüğü sağlamıştır. 5 normal kontrol ve 4 MM örneğinin (toplam 51.862 hücre) analizi yoluyla BHLHE40’ın T hücreleri ve monositlerde nispeten zenginleştiği, ifadesinin ise MM plazma hücresi kompartmanında belirgin şekilde azaldığı bulunmuştur. Bu bulgu, yığın veri (bulk) analizinde gözlemlenen hastalık ilişkili azalma eğilimini desteklemenin yanı sıra, genel ifade düzeylerinin yerel hücre kompozisyonundan belirgin ölçüde etkilendiğini de göstermektedir. Önceki çalışmalar MM evrimi sırasında bağışıklık mikroçevre yeniden yapılanmasını ve alt klonal heterojeniliği aydınlatmış olsa da, bu çalışma BHLHE40’ın ifade özelliklerini bu ekolojik çerçeveye dahil ederek ön tanısal düzeyde betimlemiştir; yine plazma hücreleri ile bağışıklık mikroçevresi arasındaki kesin düzenleyici ilişki daha ileri çalışmalara bırakılmaktadır. CellChat analizi, plazma hücreleri, monositler ve T hücreleri arasında yoğun iletişim ağlarının varlığını öngörmüştür; yine de belirli ligand-receptor eksenlerinin yönsel doğrulamanın eksikliği ve algoritmik tercihlerin tahmin sonuçlarını etkileme potansiyeli nedeniyle (, ) bu iletişim ağları şu anda yalnızca hipotez üreten bir öneme sahiptir. Ayrıca güncel analiz, aynı kaynaktan gelen hücreler arasındaki bağımsızlık dışı durumları yeterince düzeltmemiştir; bu durum farklı ifade analizinde pozitif yanılgı oranını artırabilir (, ). İleri çalışmalar, katı istatistiksel düzeltme için kaynak düzeyinde pseudo-bulk veya karma etkili modelleri, çok renkli sitometri ve alan transkriptomiği ile ligand-receptor blokajı gibi fonksiyonel deneylerle birleştirerek BHLHE40 ile ilişkili hücrelerarası etkileşimlerin mekanizmalarını nihayetinde doğrulamaya yönelmelidir.
In vitro deneyleri, bu çalışma için doğrudan işlevsel ipuçları sağladı. BHLHE40’ın çoklu miyeloma (MM) hücre hatlarında düşük ekspresyonu doğrulandıktan sonra, BHLHE40’ın aşırı ekspresyonunun MM hücre canlılığını ve EdU incorporasyonunu azalttığı, buna eşlik eden p16, p21 ve p53 gibi yaşlanma ile ilişkili düzenleyici proteinlerin yukarı düzenlendiği gözlemlendi. Bu fenotip, yaşlanmaya benzer büyüme durması ile tutarlıdır; ancak geri döndürülemez yaşlanmayı baş başına kanıtlamak için yeterli değildir; doğrulama ayrıca SA-β-gal aktivitesi, SASP profilleri, hücre döngüsü analizi ve geri döndürülebilirlik deneylerini de içermelidir. Eşzamanlı olarak, p65 fosforilasyonunda artış ve IκBα yıkımı gözlemlendi; bu da klasik NF-κB yolunun aktive olduğunu göstermektedir. NF-κB hem MM hücre hayatta kal hem de kemik iliği stromal etkileşimlere, ayrıca SASP’nin kurulmasına katılabilir; bu nedenle bu sinyallemenin yönü ve işlevsel sonuçları, fonksiyon kaybı, yol inhibisyonu ve kurtarma deneyleriyle daha ileri incelenmelidir. Önemli olan, klasik NF-κB’nin MM’de klasik olarak hayatta kalmayı ve tümör oluşumunu desteklediği, stromal etkileşimleri ve iltihabı desteklediğidir; dolayısıyla gözlemlenen p-p65 artışının ve IκBα yıkımının yol aktivasyonunu göstermesi, NF-κB’nin büyüme durmasını medye ettiğini baş başına kanıtlamaz; bu durum bağlama, zamanlama veya hücre tipine bağlı olabilir. Bunların yanı sıra, bu aşırı ekspresyon deneylerinin stromal hücreler, immün hücreler veya üç boyutlu mikrovir ortam olmadan, tek hücre kültürü MM hücre hatlarında gerçekleştirildiği de belirtilmelidir; bu nedenle yalnızca hücre içi (cell-autonomous) etkileri yakalarlar ve kemik iliği mikrovir ortamının iki yönlü plazma hücresi-stromal-sitokin etkileşimini yeniden üretemezler. Bu ekosistemde, klasik NF-κB sinyallemesi ve SASP kaynaklı faktörler bunun yerine miyeloma hücresi hayatta kalı, iltihabı ve terapötik direnci destekleyebilir; dolayısıyla BHLHE40’ın bütünsel, mikrovir bağımlı rolü bu tek hücre kültürü verilerinden çıkarılamaz ve stromal/immün ko-kültür, organoid veya in vivo doğrulamaya ihtiyaç vardır.
Bu çalışma çok boyutlu analizlerle kanıt zincirini kursa da, birkaç nesnel sınırlama dikkat çekmektedir. İlk olarak, mikrodiziliş kşşf kohortu heterojen örneklem bileşimine ve az sayıda normal kontrole sahiptir. İfade ve tek-marker ROC analizleri bağımsız bir doğrulama kohortunda yapılsa da, bu küme yalnızca altı kontrol içerir, işaretleri ayrı ayrı değerlendirir ve eşleşmiş hayatta kalma uçları sağlamaz; dolayısıyla klinik prognoz veya tanı doğrulaması oluşturmaz. İkinci olarak, dolaşımdaki plazma proteinlerine dayanan MR çıkarımı, yerel kemik iliği mikroçevresindeki patolojik sinyalleri tam olarak yansıtmayabilir ve genetik analizin istatistiksel gücü yalnızca keşif niteliğindedir. Üçüncü olarak, hücrelerarası iletişimin tek hücre düzeyinde çıkarımı, doku düzeyinde alan transkriptomiği ve akış sitometrisiyle mutlak nicelendirmeye acilen ihtiyaç duymaktadır. Son olarak, in vitro modeller yalnızca yaşlanmaya benzer büyüme durmasıyla uyumlu molekül değişikliklerini doğrulamıştır; içsel fonksiyon kaybı doğrulaması (BHLHE40 knockdown/knockout), kurtarma deneyleri, yaşlanmaya bağlı β-galaktozidaz (SA-β-gal) boyama kapsamlı bir SASP paneli, hücre döngüsü profilleştirmesi veya büyümenin geri döndürülebilirliğinin test edilmesi gibi unsurları içermemiş; daha kritik olarak da in vivo hayvan modeli verisinden yoksundur. Buna göre mevcut kanıtlar, nedenselliği veya geri döndürülemez hücre yaşlanmasını kanıtlamaktan ziyade, ilişkiselsel, aday-düzenleyici bir yorumu desteklemektedir.
5 Sonuçlar
Bu çalışma, BHLHE40’ı çoklu miyelomda yaşlanmaya benzer büyüme durması ve bağışıklık mikroçevresiyle ilişkili transkriptomik durumlarla ilişkilendirilen bir aday-düzenleyici olarak ortaya koymaktadır. BHLHE40, MM plaz hücrelerinde baskılanmıştı ve aşırı ifadesi, artmış p53/p21/p16 ifadesi ve tipik NF-κB aktivasyonuyla uyumlu değişimlerle birlikte görülmüştür. Bu bulgular, daha ileri mekanistik araştırmalar için bir temel sağlamakta, ancak BHLHE40’ı klinik tanı biyişareti veya terapötik hedef olarak kurmamaktadır.
İfadeler
Veri erişim ifadesi
Çalışmada sunulan özgün katkılar, makalenin Ek Materyal bölümünde yer almaktadır. Daha ayrıntılı başvurular ilgili yazar ile yapılabilir.
Ahlak beyanı
Sadece ticari olarak temin edilebilen yerleşik hücre hatları kullanıldığı için, yerel mevzuat ve kurumsal gerekliliklere uygun olarak insanlara yönelik çalışmalar için etik onay gerekmemiştir.
Yazar katkıları
YP: Araştırma, Özgün taslak yazımı, Biçimsel analiz, Metodoloji, Veri düzenlemesi. PL: Veri düzenlemesi, Yazılım, Metodoloji, Araştırma, Özgün taslak yazımı. ZP: Veri düzenlemesi, Özgün taslak yazımı, Yazılım, Araştırma, Metodoloji. DX: Yazım – inceleme ve düzenleme, Biçimsel analiz. WY: Yazım – inceleme ve düzenleme, Kavramsal çerçeve, Gözetim, Metodoloji.
Finansman
Yazar(lar), bu çalışma ve/veya yayımı için herhangi bir finansal destek alınmadığını beyan etmiştir.
Çıkar çatışması
Yazar(lar), bu çalışmanın, potansiyel bir çıkar çatışması olarak değerlendirilebilecek herhangi bir ticari veya finansal ilişki olmadan yürütüldüğünü beyan etmiştir.
Üretken yapay zekâ beyanı
Yazar(lar), bu el yazısının oluşturulmasında üretken yapay zekânın kullanılmadığını beyan etmiştir.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text), Frontiers tarafından yapay zekâ desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların incelemesini de içeren makul çabalar doğruluk açısından sağlanmıştır. Herhangi bir sorun tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncı notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini mutlaka temsil etmez. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ek materyal
Bu makalenin Ek Materyali çevrimiçi olarak şu adreste bulunabilir: https://www.frontiersin.org/articles/10.3389/fonc.2026.1989759/full#supplementary-material
Ek Tablo 1
Bu çalışmada kullanılan veri kaynakları ve ayrıntılı bilgiler; GEO mikrodizi/scRNA-seq veri setleri, GWAS özet istatistikleri, pQTL verileri ve hücre yaşlanması gen setini içermektedir.
Ek Tablo 2
Gerçek Zamanlı Nicel PCR için kullanılan primer dizileri.
Ek Tablo 3
Normal ve çoklu miyeloma grupları arasında belirlenen toplam 1.928 farklı ifade edilen gen.
Ek Tablo 4
CellAge veri tabanından çıkarılan, 1.061 gen içeren hücre yaşlanması ilişkili gen seti.
Ek Tablo 5
Turquoise WGCNA modül genlerinin, DEGs’in ve CellAge hücre yaşlanması gen setinin kesişiminden elde edilen 34 örtüşen genin tam listesi.
Ek Şekil 1
Yöntemsel tanı.
Ek Şekil 2
Bağımsız GSE39754 kohortunda dış validasyon.
Ek Şekil 3
28 ssGSEA bağışıklık imzası skorları arasındaki karşılıklı korelasyon matrisi.
Ek Şekil 4
Hücre düzeyinde annotasyon ve hücre tipi çapraz karşılaştırma.
-
Dimopoulos MAMoreau PTerpos EMateos MVZweegman SCook Get al.
Çoklu miyeloma: Tanı, tedavi ve takip için EHA-ESMO klinik uygulama rehberleri. Ann Oncol. (2021) 32:309–22. doi: 10.1016/j.annonc.2020.11.014
-
Garfall AL.
Çoklu miyeloma için yeni biyolojik tedaviler. Annu Rev Med. (2024) 75:13–29. doi: 10.1146/annurev-med-050522-033815
-
KumarSKCallanderNSAdekolaKAndersonLDBaljevicMBazRet al.
Multiple myeloma, version 2.2024, NCCN clinical practice guidelines in oncology. J Natl Compr Canc Netw. (2023) 21:1281–301. doi: 10.6004/jnccn.2023.0061
-
de JongMMEKellermayerZPapazianNTahriSHofste Op BruininkDHoogenboezemRet al.
The multiple myeloma microenvironment is defined by an inflammatory stromal cell landscape. Nat Immunol. (2021) 22:769–80. doi: 10.1038/s41590-021-00931-3
-
SchmittCAWangBDemariaM.
Senescence and cancer – role and therapeutic opportunities. Nat Rev Clin Oncol. (2022) 19:619–36. doi: 10.1038/s41571-022-00668-4
-
WangBHanJElisseeffJHDemariaM.
The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. (2024) 25:958–78. doi: 10.1038/s41580-024-00727-x
-
TakasugiMYoshidaYOhtaniN.
Cellular senescence and the tumour microenvironment. Mol Oncol. (2022) 16:3333–51. doi: 10.1002/1878-0261.13268
-
González-GualdaEBakerAGFrukLMuñoz-EspínD.
A guide to assessing cellular senescence in vitro and in vivo. FEBS J. (2021) 288:56–80. doi: 10.1111/febs.15570
-
Plakhova N, Panagopoulos V, Cantley MD, Trainor LJ, Hewett D, Clark K ve diğerleri. Yaşa bağlı mezenkimal stromal hücre yaşlanması, MGUS’tan çoklu miyeloma ilerlemesi ile ilişkilidir. Leukemia. (2025) 39:1464–75. doi: 10.1038/s41375-025-02621-7
-
Seymour F, Carmichael J, Taylor C, Parrish C, Cook G. Çoklu miyelomada bağışıklık yaşlanması: mitokondriyal disfonksiyon için bir rol? Leukemia. (2022) 36:2368–73. doi: 10.1038/s41375-022-01653-7
-
Tacutu R, Thornton D, Johnson E, Budovsky A, Barardo D, Craig T ve diğerleri. İnsan yaşlanma genomik kaynakları: yeni ve güncellenmiş veritabanları. Nucleic Acids Res. (2018) 46:D1083–90. doi: 10.1093/nar/gkx1042
-
Cohen YC, Zada M, Wang S, Bornstein C, David E, Moshe A ve diğerleri. Tek hücreli dizileme ile geri dönen çoklu miyeloma hastalarında direnç yollarının ve terapötik hedeflerin belirlenmesi. Nat Med. (2021) 27:491–503. doi: 10.1038/s41591-021-01232-w
-
Dang M, Wang R, Lee HC, Patel KK, Becnel M, Han G ve diğerleri. Çoklu miyeloma öncül hastalığının tek hücreli klonotipik ve transkripsiyonel evrimi. Cancer Cell. (2023) 41:1032–47. doi: 10.1016/j.ccell.2023.05.007
-
Tirier SM, Mallm J, Steiger S, Poos A, Awwad MH, Siesen N ve diğerleri. Tek hücreli transkripsiyonomiği ile inatçı çoklu miyelomada klon-spesifik mikroçevre etkisi ve ilaç yanıtı. Nat Commun. (2021) 12:6960. doi: 10.1038/s41467-021-26951-z
-
Wang, Liu, Dai, Tang, Xin, Wang ve ark. Tek hücreli RNA-seq analizi, pankreas tümör mikroçevresinde hiperaktivize glikoliz gösteren BHLHE40 kaynaklı tümör artırıcı nötrofilleri ortaya koyar. Gut. (2023) 72:958–71. doi: 10.1136/gutjnl-2021-326070
-
Yang, Zhang, Sun, Nie, Zhang, Wang ve ark. Tek hücreli ve alan transkriptom profilleştirmesi, transkripsiyon faktörü BHLHE40’u metastatik kolorektal karsinomda epitel-mezenkimal geçişi sürükleyen bir faktör olarak belirler. Cancer Res. (2024) 84:2202–17. doi: 10.1158/0008-5472.CAN-23-3264
-
Wu, Manne, Ngai, Baxter, Huang, Freilich ve ark. CD8(+) T hücre yorulmasının in vitro modellemesi, CRISPR taraması aracılığıyla BHLHE40’a ait bir rol ortaya koyar. Sci Immunol. (2023) 8:eade3369. doi: 10.1126/sciimmunol.ade3369
-
Xu, Ma, Wu, Chen, Xue, Wang ve ark. DEC1 proteininin aşırı ifadesi in vitro yaşlanma indükler ve özofagus skuamöz hücre karsinomunda daha iyi sağkalımla ilişkilidir. PloS One. (2012) 7:e41862. doi: 10.1371/journal.pone.0041862
-
Cippitelli, Stabile, Kosta, Petillo, Lucantonio, Gismondi ve ark. NF-κB sinyallemenin çoklu miyeloma ve mezenkimal stromal hücreler arasındaki etkileşimdeki rolü. Int J Mol Sci. (2023) 24(3):1823. doi: 10.3390/ijms24031823
-
Heider, Nickel, Högner, Bassermann. Çoklu miyeloma: moleküler patogenez ve hastalık evrimi. Oncol Res Treat. (2021) 44:672–81. doi: 10.1159/000520312
-
MauraF, BergsagelP.
Multiple myelomanın moleküler patojenezisi: klinik çıkarımlar. Hematol Oncol Clin North Am. (2024) 38:267–79. doi: 10.1016/j.hoc.2023.12.010
-
FerkingstadE, SulemP, AtlasonB, SveinbjornssonG, MagnussonM, StyrmisdottirE ve ark.
Plazma proteomunun genetik ve hastalıkla büyük ölçekli entegrasyonu. Nat Genet. (2021) 53:1712–21. doi: 10.1038/s41588-021-00978-w
-
JohnsonWE, LiC, RabinovicA.
Empirik Bayes yöntemlerini kullanarak dizili veri ekspresyon verilerindeki parti etkilerini düzeltme. Biostatistics. (2007) 8:118–27. doi: 10.1093/biostatistics/kxj037
-
RitchieM, HipsonB, WuD, HuY, LawC, ShiW ve ark.
limma: RNA dizileme ve dizili çalışmalar için farklılıklarını analiz etme gücü. Nucleic Acids Res. (2015) 43:e47. doi: 10.1093/nar/gkv007
-
LangfelderP, HorvathS.
WGCNA: ağırlıklı korelasyon ağı analizi için bir R paketi. BMC Bioinf. (2008) 9:559. doi: 10.1186/1471-2105-9-559
-
YuG, WangL, HanY, HeQY.
clusterProfiler: gen kümeleri arasındaki biyolojik temaları karşılaştırmak için bir R paketi. OMICS. (2012) 16:284–7. doi: 10.1089/omi.2011.0118
-
Friedman J, Hastie T, Tibshirani R.
Koordinat inişlemi aracılığıyla genelize edilmiş lineer modeller için düzenlendirme yolları. J Stat Softw. (2010) 33:1–22. doi: 10.18637/jss.v033.i01
-
Robin X, Turck N, Hainard A, Tiberti N, Lisacek F, Sanchez J, ve dğr.
pROC: ROC eğrilerini analiz etmek ve karşılaştırmak için R ve S+ için açık kaynaklı paket. BMC Bioinf. (2011) 12:77. doi: 10.1186/1471-2105-12-77
-
Hemani G, Zheng J, Elsworth B, Wade KH, Haberland V, Baird D, ve dğr.
MR-Base platformı insan fenotipinde sistematik nedensel çıkarım sağlar. eLife. (2018) 7:e34408. doi: 10.7554/eLife.34408
-
Charoentong P, Finotello F, Angelova M, Mayer C, Efremova M, Rieder D, ve dğr.
Pan-kanser immünogenomik analizleri genotip-immünofenotip ilişkilerini ve blokaj yanıtının öngörücülerini ortaya koyar. Cell Rep. (2017) 18:248–62. doi: 10.1016/j.celrep.2016.12.019
-
Subramanian A, Tamayo P, Mootha VK, Mukherjee S, Bert B, Gillette M, ve dğr.
Gen kümesi zenginleştirme analizi: genom çapında ekspresyon profillerini yorumlamak için bilgi tabanlı bir yaklaşım. Proc Natl Acad Sci USA. (2005) 102:15545–50. doi: 10.1073/pnas.0506580102
-
Hänzelmann S, Castelo R, Guinney J.
GSVA: dizi dizisi ve RNA-seq verileri için gen kümesi değişim analizi. BMC Bioinf. (2013) 14:7. doi: 10.1186/1471-2105-14-7
-
Stuart T, Butler A, Hoffman P, Hafemeister C, Papalexi E, Mauck W ve ark. Tek hücre verilerinin kapsamlı bütünleştirilmesi. Cell. (2019) 177:1888–902. doi: 10.1016/j.cell.2019.05.031
-
McGinnis C, Murrow L, Gartner ZJ. DoubletFinder: yapay en yakın komşular kullanılarak tek hücre RNA dizileme verilerinde çift (doublet) tespiti. Cell Syst. (2019) 8:329–37. doi: 10.1016/j.cels.2019.03.003
-
Hu C, Li T, Xu Y, Zhang X, Li F, Bai J ve ark. CellMarker 2.0: insan/fare el ile düzenlenmiş hücre belirteçlerinin güncellenmiş veritabanı ve scRNA-seq verilerine dayalı web araçları. Nucleic Acids Res. (2023) 51:D870–6. doi: 10.1093/nar/gkac947
-
Jin S, Guerrero-Juarez CF, Zhang L, Chang I, Ramos R, Kuan CH ve ark. CellChat ile hücre-hücre iletişiminin çıkarımı ve analizi. Nat Commun. (2021) 12:1088. doi: 10.1038/s41467-021-21246-9
-
Avet-Loiseau H, Davies FE, Samur M, Corre J, D’Agostino M, Kaiser M ve ark. Yüksek riskli çoklu miyeloma tanımına ilişkin Uluslararası Miyeloma Derneği/Uluslararası Miyeloma Çalışma Grubu uzlaşı önerileri. J Clin Oncol. (2025) 43:2739–51. doi: 10.1200/jco-24-01893
-
Rodriguez-Otero P, Usmani S, Cohen N, van de Donk N, Leleu X, Gállego Pérez-Larraya J, et al. International Myeloma Working Group immunotherapy committee consensus guidelines and recommendations for optimal use of T-cell-engaging bispecific antibodies in multiple myeloma. Lancet Oncol. (2024) 25:e205–16. doi: 10.1016/S1470-2045(24)00043-3
-
Cheng Y, Sun F, Alapat D, Wanchai V, Mery D, Siegel E, et al. Multi-omics reveal immune microenvironment alterations in multiple myeloma and its precursor stages. Blood Cancer J. (2024) 14:194. doi: 10.1038/s41408-024-01172-x
-
Friedrich M, Neri P, Kehl N, Michel J, Steiger S, Kilian M, et al. The pre-existing T cell landscape determines the response to bispecific T cell engagers in multiple myeloma patients. Cancer Cell. (2023) 41:711–25. doi: 10.1016/j.ccell.2023.02.008
-
Verheye E, Kancheva D, Satilmis H, Vandewalle N, Fan R, Bardet P, et al. A single-cell transcriptomic map of the murine and human multiple myeloma immune microenvironment across disease stages. J Hematol Oncol. (2024) 17:107. doi: 10.1186/s13045-024-01629-3
-
Dong Z, Luo Y, Yuan Z, Tian Y, Jin T, Xu F. Cellular senescence and SASP in tumor progression and therapeutic opportunities. Mol Cancer. (2024) 23:181. doi: 10.1186/s12943-024-02096-7
-
Fairfield, Dudakovic, Khatib, Farrell, Costa, Falank ve ark. Mielomadan modifiye edilmiş adipositler metabolik disfonksiyon ve yaşlanmayla ilişkili sekretor fenotip sergiler. Cancer Res. (2021) 81:634–47. doi: 10.1158/0008-5472.CAN-20-1088
-
McHugh, Durán, Gil. Yaşlanma: kanser ve yaşa ilişkili hastalıklarda terapötik hedef. Nat Rev Drug Discov. (2025) 24:57–71. doi: 10.1038/s41573-024-01074-4
-
Colucci, Sarill, Maddalena, Valdata, Troiani,assarotti ve ark. Kanserde yaşlanma. Cancer Cell. (2025) 43:1204–26. doi: 10.1016/j.ccell.2025.05.015
-
Hu, Yuan, Zhong, Liu, Wang, Liu ve ark. Hücre yaşlanması ve hematolojik malignansiler: patojenezden terapilere. Pharmacol Ther. (2021) 223:107817. doi: 10.1016/j.pharmthera.2021.107817
-
Plakhova, Panagopoulos, Vandyke, Zannettino, Mrozik ve ark. Hematolojik malignansilerde mezenkimal stromal hücre yaşlanması. Cancer Metastasis Rev. (2023) 42:277–96. doi: 10.1007/s10555-022-10069-9
-
Reimand, Isserlin, Voisin, Kucera, Tannus-Lopes, Rostamianfar ve ark. Omiks verilerinin g:Profiler, GSEA, Cytoscape ve EnrichmentMap kullanılarak yol zenginleştirme analizi ve görselleştirilmesi. Nat Protoc. (2019) 14:482–517. doi: 10.1038/s41596-018-0103-9
-
Avila Cobos F, Alquicira-Hernandez J, Powell J E, Mestdagh P, De Preter K. Transkriptomik veri için hücre tipi çözümleme hatlarının karşılaştırılması. Nat Commun. (2020) 11:5650. doi: 10.1038/s41467-020-19015-1
-
Lee H, Ahn S, Maity R, Leblay N, Ziccheddu B, Truger M ve ark. Çoklu miyelomda BCMA- veya GPRC5D hedefli immunoterapilere karşı antijen kaçış mekanizmaları. Nat Med. (2023) 29:2295–306. doi: 10.1038/s41591-023-02491-5
-
Pilcher W C, Yao L, Gonzalez-Kozlova E, Pita-Juarez Y, Karagkouni D, Acharya C R ve ark. Tek hücre atlası, çoklu miyelomla ilişkili kemik iliği immün mikroçevresindeki düzensizliği karakterize eder ve sonuçlarla bağlantılıdır. Nat Cancer. (2026) 7:224–46. doi: 10.1038/s43018-025-01072-4
-
Yao L, Wang J, Jayasinghe R G, O’Neal J, Tsai C F, Rettig M ve ark. Çoklu miyelomda terapötik hedeflerin tek hücre ile keşfi ve çoklu-omik karakterizasyonu. Cancer Res. (2023) 83:1214–33. doi: 10.1158/0008-5472.CAN-22-1769
-
Dimitrov D, Türei D, Garrido-Rodriguez M, Burmedi P, Nagai J S, Boys C ve ark. Tek hücre RNA-seq verisinden hücre-hücre iletişiminin çıkarılmasında yöntemlerin ve kaynakların karşılaştırılması. Nat Commun. (2022) 13:3224. doi: 10.1038/s41467-022-30755-0
-
Jin S, Plikus M V, Nie Q. Tek hücre transkriptomiğinden hücre-hücre iletişiminin sistematik analizi için CellChat. Nat Protoc. (2025) 20:180–219. doi: 10.1038/s41596-024-01045-4
-
Squair JWG, Gautier M, Kathé C, Anderson MA, James ND, Hutson TH, et al.
Confronting false discoveries in single-cell differential expression. Nat Commun. (2021) 12:5692. doi: 10.1038/s41467-021-25960-2
-
Zimmerman KD, Espeland M, Langefeld CD.
A practical solution to pseudoreplication bias in single-cell studies. Nat Commun. (2021) 12:738. doi: 10.1038/s41467-021-21038-1
-
Ding Y, Liu Z, Liao Y, Huang K, Jiao X, Zhu J, et al.
CBX7 regulates chemotherapy-induced senescence-like growth arrest in multiple myeloma via the ERK/STAT3/PIM1 axis. J Transl Med. (2025) 23:1292. doi: 10.1186/s12967-025-07306-4
-
Lehoczki A, Menyhart O, Andrikovics H, Fekete M, Kiss C, Mikala G, et al.
Prognostic impact of a senescence gene signature in multiple myeloma. GeroScience. (2025) 47:5025–37. doi: 10.1007/s11357-025-01622-9
Summary
Keywords
BHLHE40, cellular senescence, immune microenvironment, Mendelian randomization, multiple myeloma
Citation
Pei Y, Li P, Pu Z, Xu D and Yang W (2026) Integrated bioinformatics and in vitro analyses identify BHLHE40 as a candidate regulator associated with senescence-like growth arrest in multiple myeloma. Front. Oncol. 16:1989759. doi: 10.3389/fonc.2026.1989759
Received
05 September 2026
Revised
25 October 2026
Accepted
30 October 2026
Published
11 November 2026
Volume
16 – 2026
Wenbo Ma, Southern Medical University, China
Syed H. Mehdi, University of Arkansas for Medical Sciences, United States
Pegah Abdollahi, Oslo University Hospital, Norway
Farhan Ikhtiar, Emerson Üniversitesi, Multan, Pakistan
© 2026 Pei, Li, Pu, Xu ve Yang.
Bu makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında açık erişimli olarak dağıtılmıştır. Kabul görmüş akademik uygulamalar doğrultusunda, orijinal yazar(lar)ın ve telif hakkı sahib(ler)inin atıf yapılması ve bu dergideki orijinal yayının belirtilmesi koşuluyla, başka platformlarda kullanım, dağıtım veya çoğaltma mümkündür. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izin verilmez.
*İletişim: Wenxiu Yang, yangwenxiu2026@126.com
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve yalnızca bağlı oldukları kuruluşların, ya da yayıncının, editörlerin ve hakemlerin görüşlerini yansıtmayabilir. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddiaya yayıncı tarafından garanti verilmez veya desteklenmez.